深度解析医学证据,lxfs.net为你支撑决策
背景介绍
术后肌腱再生取决于纤维化进程的精确时空调控,异常纤维化则驱动病理性粘连形成并损害功能恢复。肌腱损伤(撕裂和断裂)是临床最常见的肌肉骨骼疾病之一,主要发生于参与高强度体育活动的运动员和老年人。手术缝合仍是恢复肌腱结构连续性最广泛使用的临床方法。修复后,肌腱愈合以三个重叠阶段为特征:炎症期(第1至7天)、增殖期(第3至14天)和重塑期(第10天起)。然而,早期愈合阶段过度炎症导致粘连,增殖期异常愈合导致病理性纤维化,这一级联最终延迟重塑期,造成机械性能差、功能恢复受损和再损伤风险增加。此外,结构上,肌腱损伤破坏胶原和细胞组织并损害肌腱-腱旁界面,加重粘连形成。因此,应对这些挑战需要一种功能分区策略,能够同时促进内源性再生并防止腱周粘连。成纤维细胞的机械激活是早期炎症期腱周粘连的关键驱动因素。活化的成纤维细胞黏附于损伤部位,破坏腱鞘的天然润滑屏障,并持续促进粘连形成。据报道,在创造润滑微环境的同时抑制成纤维细胞活化是减轻粘连的有效策略。例如,Xiang等工程化了一种润滑基因水凝胶贴片,其PEG水凝胶外层在肌腱滑动期间减少界面摩擦,从而抑制机械摩擦引起的成纤维细胞活化。然而,仅物理润滑无法抑制成纤维细胞内的分子级联。为此,Zhuang等开发了一种负载塞来昔布的微点生物材料系统,抑制COX-2活性并减弱前列腺素信号,有效抑制成纤维细胞活化。COX-2是一种典型的损伤诱导炎症介质,将早期前列腺素相关炎症信号与随后的基质细胞活化和组织重塑联系起来。尽管其他炎症介质和纤维化通路也参与肌腱粘连形成,但COX-2表现出独特的早期诱导特征,使其成为炎症初始阶段干预的更合适靶点。基于此,局部减弱过度COX-2信号可保留早期炎症在启动修复中的作用,同时限制异常炎症的持续放大。然而,大多数现有策略仅关注早期炎症阶段,忽视了组织重塑过程中从炎症到纤维化的关键转变。因此,调控后期修复的分子介质不可或缺。值得注意的是,S100A4主要由巨噬细胞和腱细胞表达,在损伤修复过程中作为炎症反应和纤维化重塑的关键调节因子。其持续过表达驱动肌腱纤维化,使S100A4靶向干预成为一种有前景的抗纤维化策略,以增强肌腱修复结果并恢复肌腱功能。因此,理想的治疗策略必须与肌腱愈合的时间轨迹进程相一致,能够精确调节炎症、抑制异常成纤维细胞活化并抑制纤维化进展,以实现真正的功能性肌腱再生。
研究思路
针对上述挑战,西北大学范代娣教授、朱晨辉教授、李阳等团队开发了一种自发相分离驱动的Janus水凝胶(SPS-JH),用于肌腱再生的时空调控。外层由甲基丙烯酸化透明质酸(HA-AEMA)亲水基质组成,通过MMP-2可裂解肽CGPGLAGGGC(MMP-2sp)交联,并整合4-溴苯硼酸修饰的聚乙烯亚胺(PEI-PBA)/siRNA聚合物用于COX-2 siRNA的响应性递送。相反,内层由负载疏水性尼氯酰胺(NEN)的疏水性聚(丙交酯)-b-聚(丙二醇)-b-聚(丙交酯)二甲基丙烯酸酯(PLD)基质组成。利用一步光交联过程,亲水和疏水前体的不混溶性驱动自发相分离,在1:1体积比下产生稳定的双层水凝胶。这种Janus结构实现了肌腱再生的空间分离和时间协调调控。在炎症期,外层亲水层最初提供润滑界面,同时经历基质金属蛋白酶-2(MMP-2)介导的降解以释放COX-2 siRNA,从而抑制成纤维细胞活化和防止粘连形成。同时,内层疏水层提供持续机械支撑,并通过释放NEN在炎症和增殖阶段调控纤维化进展,NEN促进巨噬细胞极化和抑制纤维生成。这一时空控制系统将肌腱愈合范式从纤维化瘢痕转变为功能性再生。具体而言,团队通过EDC/NHS介导的酰胺化反应将AEMA接枝到HA骨架上引入光交联乙烯基,1H NMR和FTIR证实HA-AEMA成功合成;通过开环聚合合成PLA-b-PPG-b-PLA三嵌段共聚物并甲基丙烯酰化获得PLD,1H NMR和FTIR证实成功合成;通过4-溴甲基苯硼酸与PEI在甲醇中回流反应合成PEI-PBA,1H NMR证实成功合成。基于可降解性、疏水性和光交联性的综合评价,选择P3+L4D作为优化的PLD配方。相关内容以 Spontaneous Phase Separation-Driven Janus Hydrogel Spatiotemporally Orchestrates the Fibrotic Progression for Functional Tendon Regeneration 发表在 Biomaterials !
图片解析
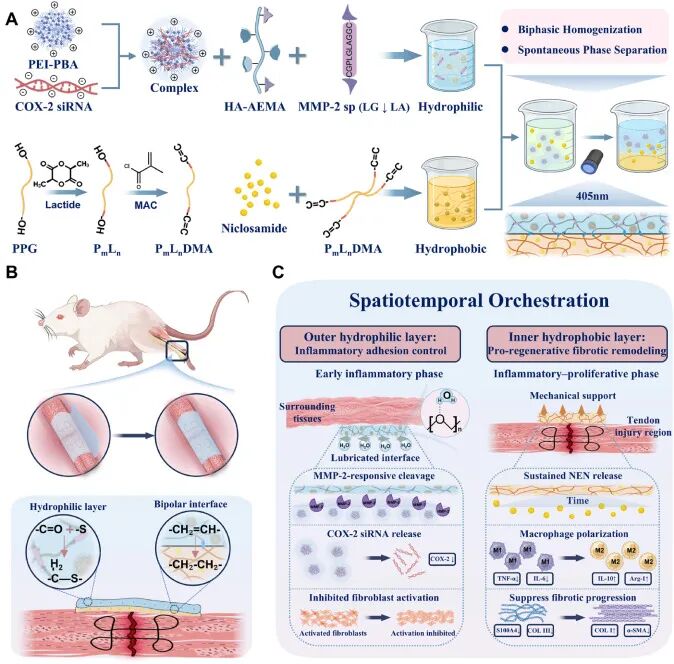
Scheme 1. 自发相分离驱动Janus水凝胶(SPS-JH)用于功能性肌腱再生过程中纤维化进程时空调控的设计与制备示意图:(A) 自发相分离驱动一体化Janus水凝胶制备过程示意图;(B) SPS-JH在大鼠跟腱损伤模型中应用示意图;(C) SPS-JH协调阶段特异性生物学应答以调控纤维化进程并促进功能性肌腱再生的机制示意图。
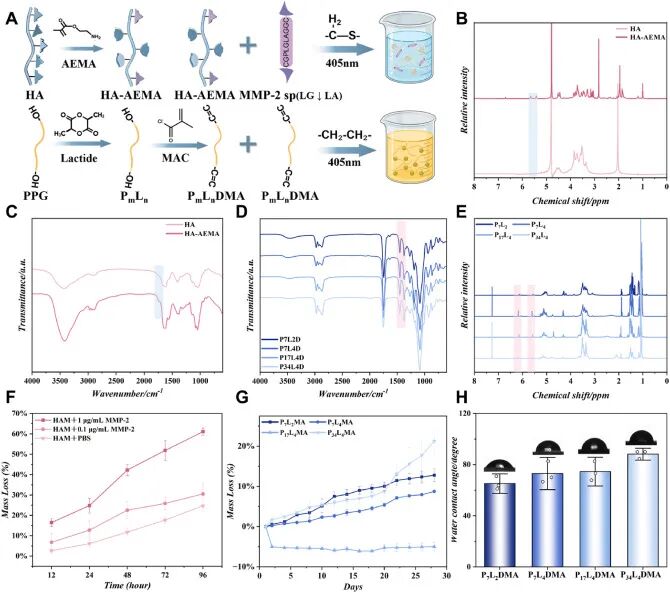
图1. HAM和PLD基础材料的制备与表征:(A) 外层通过MMP-2可裂解肽(CGPLGLAGGGC)的硫醇基团与亲水基质内乙烯基之间的硫醇-烯点击反应设计为MMP-2响应性水凝胶示意图;(B) HA-AEMA的1H NMR谱;(C) HA-AEMA的FTIR谱;(D) PLD的FTIR谱;(E) PLD的1H NMR谱;(F) HAM层在不同MMP-2浓度下的重量损失;(G) 不同PmLnD配方在去离子水中的降解行为;(H) HAM和PmLnD层的水接触角。
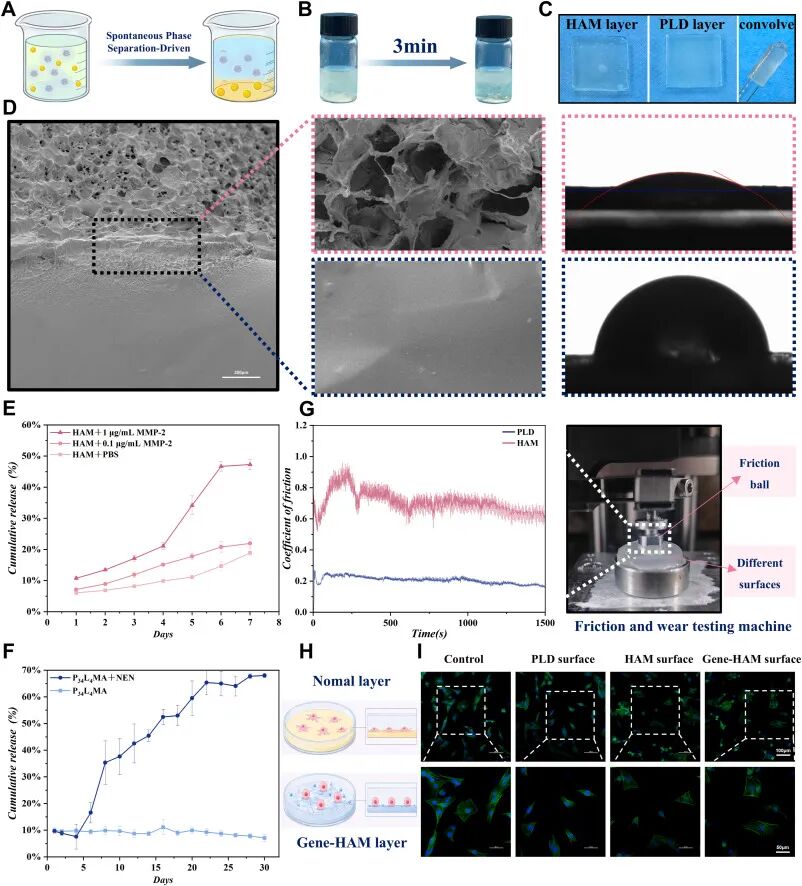
图2. 自发相分离驱动Janus水凝胶(SPS-JH)的制备与表征:(A-B) SPS-JH形成过程中前体溶液自发相分离和自分层示意图;(C-D) 光交联后SPS-JH的宏观和SEM图像;(E) 不同MMP-2条件下7天内HAM层siRNA的累积释放(平均值±SD,n=3);(F) 30天内PLD层NEN的累积释放(平均值±SD,n=3);(G) HAM表面(红色)和PLD表面(蓝色)的摩擦系数-时间曲线(n=3);(H) 不同水凝胶表面细胞形态示意图;(I) 不同表面培养1天的208F细胞荧光图像,细胞骨架用鬼笔环肽(绿色)染色,细胞核用DAPI(蓝色)染色。
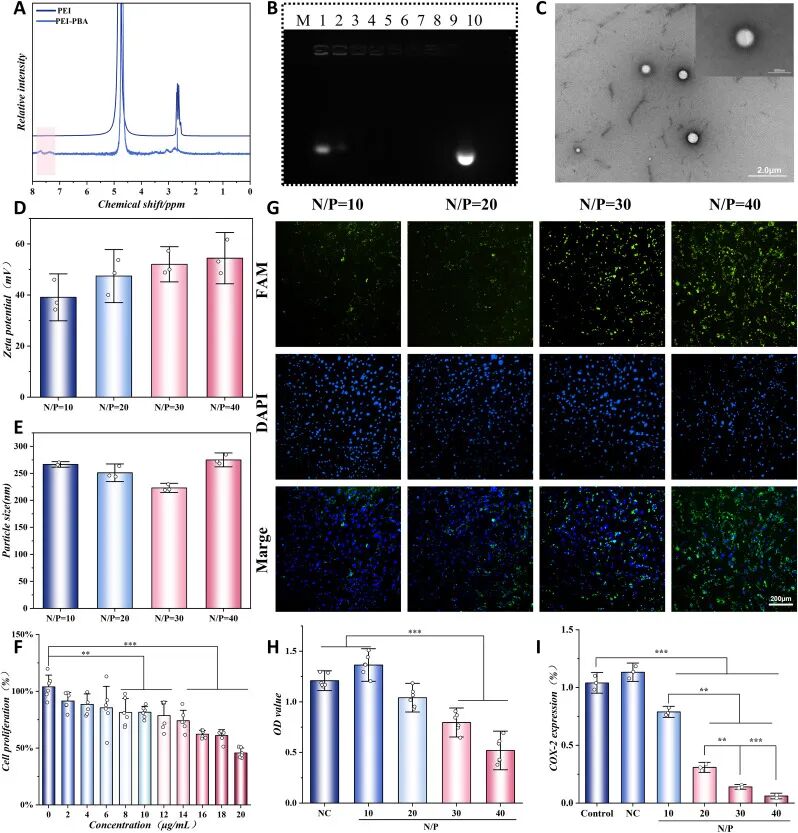
图3. 不同N/P比下PEI-PBA/COX-2 siRNA复合物的表征与优化:(A) PEI-PBA的1H NMR谱;(B) 使用6%琼脂糖凝胶的PEI-PBA/COX-2 siRNA复合物琼脂糖凝胶电泳,泳道M为Marker,泳道1-6对应N/P比1、5、10、20、30和40;(C) PEI-PBA/COX-2 siRNA复合物的TEM图像;(D) 不同N/P比下PEI-PBA/COX-2 siRNA复合物的zeta电位;(E) 不同N/P比下PEI-PBA/COX-2 siRNA复合物的粒径;(F) 不同浓度PEI-PBA处理的208F细胞活力;(G) 不同N/P比PEI-PBA/COX-2 siRNA复合物转染的208F细胞荧光图像,绿色荧光表示FAM标记的siRNA;(H) 不同N/P比PEI-PBA/COX-2 siRNA复合物转染的208F细胞活力;(I) 不同N/P比PEI-PBA/COX-2 siRNA复合物的转染效率。
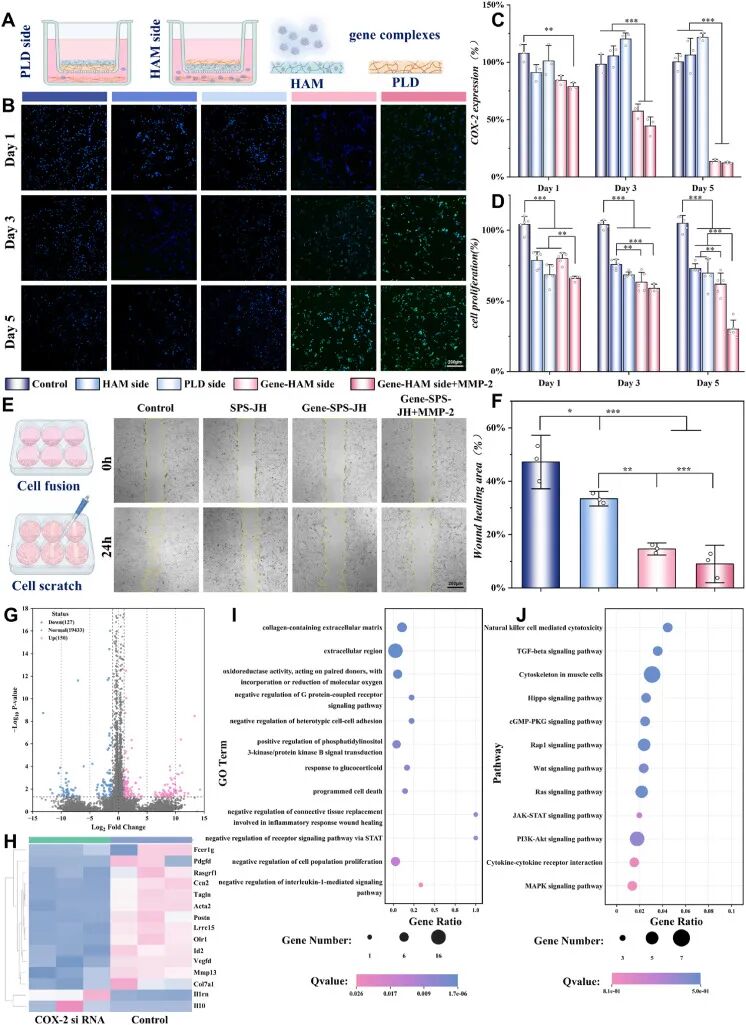
图4. SPS-JHs基因复合物的单向释放实现持续基因沉默并在体外抑制细胞增殖和迁移:(A-B) 用于评估SPS-JHs不同侧基因复合物释放和细胞摄取的Transwell实验;(C) 不同水凝胶5天内对细胞增殖的持续抑制(平均值±SD,n=3);(D) 不同水凝胶5天内的持续基因沉默效率(平均值±SD,n=3);(E) 0和24 h时208F细胞迁移的代表性图像;(F) 细胞迁移率的定量分析(平均值±SD,n=3);(G) 火山图显示组间上调和下调基因;(H) 差异表达基因热图;(I) 差异表达基因GO富集分析;(J) 差异表达基因KEGG通路富集分析。
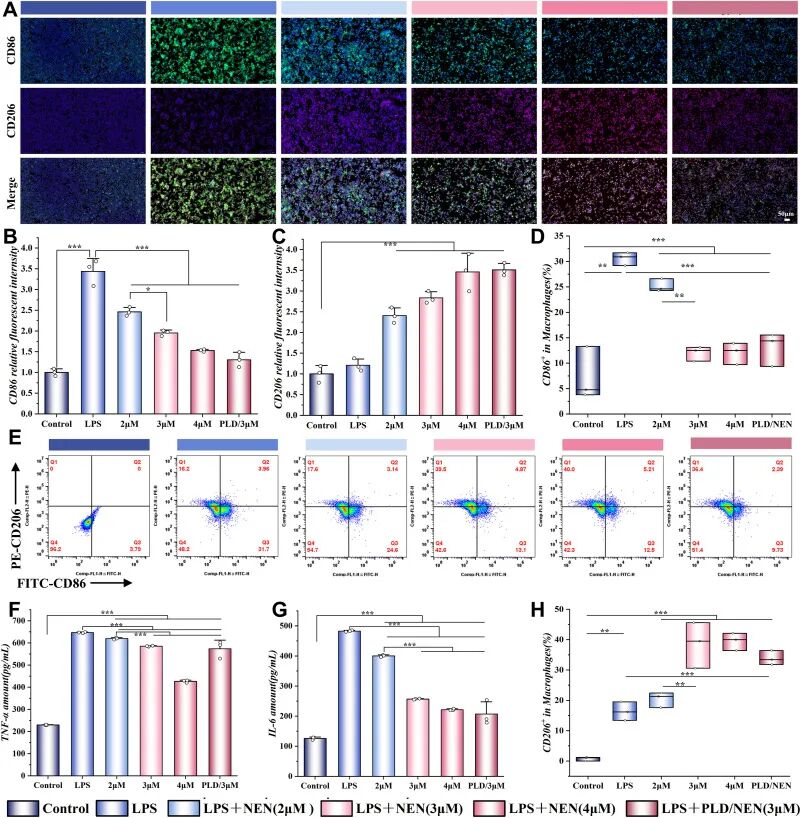
图5. SPS-JH的PLD层释放的NEN在体外的调节作用:(A) RAW264.7巨噬细胞中CD86和CD206表达的代表性免疫荧光图像;(B) CD86荧光强度定量(平均值±SD,n=3);(C) CD206荧光强度定量(平均值±SD,n=3);(D) CD86阳性巨噬细胞定量分析(平均值±SD,n=3);(E) CD86阳性和CD206阳性巨噬细胞的流式细胞术分析;(F) ELISA定量TNF-α水平(平均值±SD,n=3);(G) ELISA定量IL-6水平(平均值±SD,n=3);(H) CD206阳性巨噬细胞定量分析(平均值±SD,n=3)。
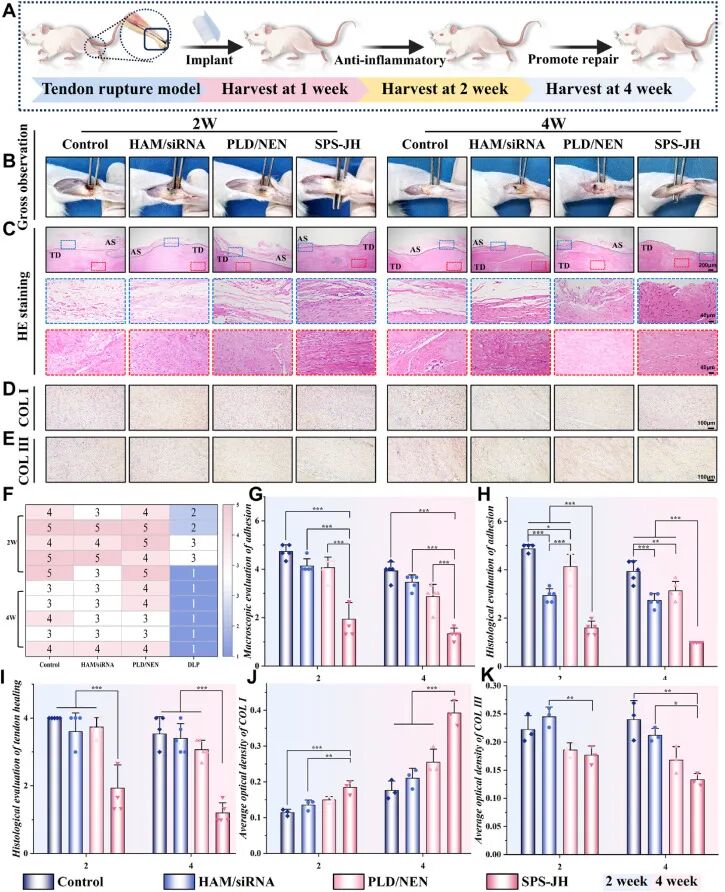
图6. SPS-JHs在大鼠跟腱损伤模型中的体内抗粘连和促愈合功效:(A) 大鼠跟腱损伤模型建立和治疗方案示意图;(B) 术后2和4周手术部位的肉眼形态学观察;(C) 术后2和4周H&E染色评估腱周粘连和肌腱组织愈合(TD:肌腱缺损区域;AS:邻近周围组织);(D) Col-I免疫组化染色图像;(E) Col-III免疫组化染色图像;(F) 粘连评分分布(每组n=3只大鼠);(G) 肉眼腱周粘连评分(平均值±SD,n=3);(H) 组织学腱周粘连评分(平均值±SD,n=3);(I) 肌腱愈合质量组织学评分(平均值±SD,n=3);(J-K) Col-I和Col-III表达的半定量分析(平均值±SD,n=3)。
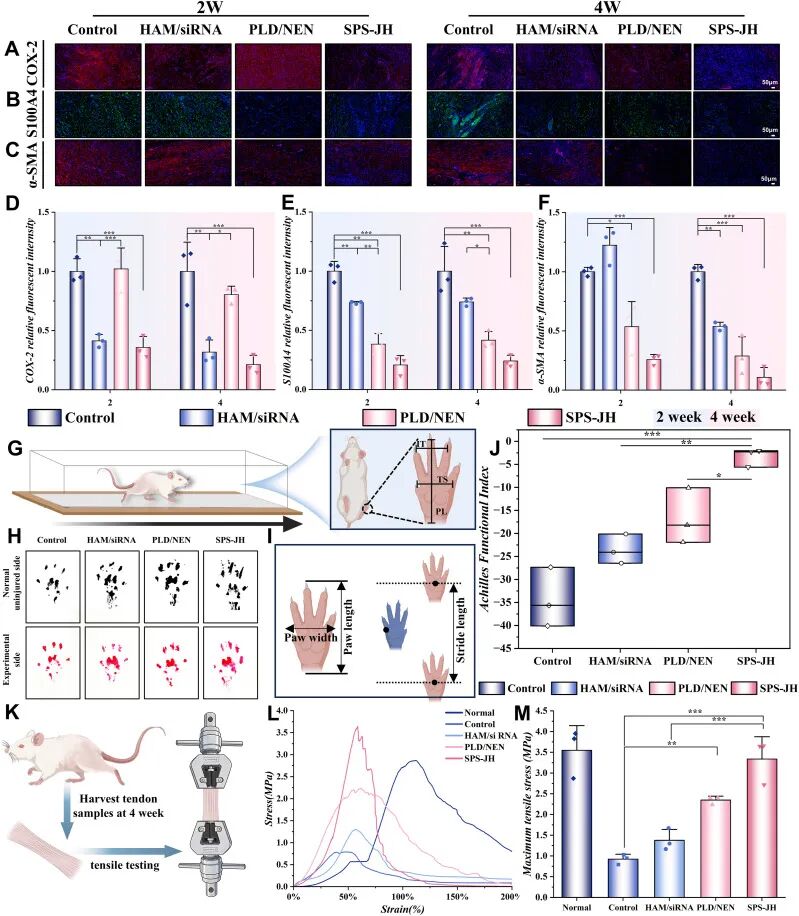
图7. 纤维化调控和功能性肌腱恢复的体内评估:(A-C) COX-2、S100A4和α-SMA表达的代表性免疫荧光图像;(D-F) COX-2、S100A4和α-SMA光密度的半定量分析(平均值±SD,n=3);(G) 大鼠实时步态分析和爪参数示意图,包括趾间距离(IT,第二至第四趾)、趾展(TS,第一至第五趾)和爪长(PL)(每组n=3只大鼠);(H) 代表性步态分析图像;(I) 步态时空参数示意图;(J) 术后4周AFI(平均值±SD,n=3);(K) 术后4周修复肌腱组织拉伸测试示意图;(L) 不同组肌腱的代表性应力-应变曲线(每组n=3只大鼠);(M) 不同实验组修复肌腱的最大拉伸应力(平均值±SD,n=3)。
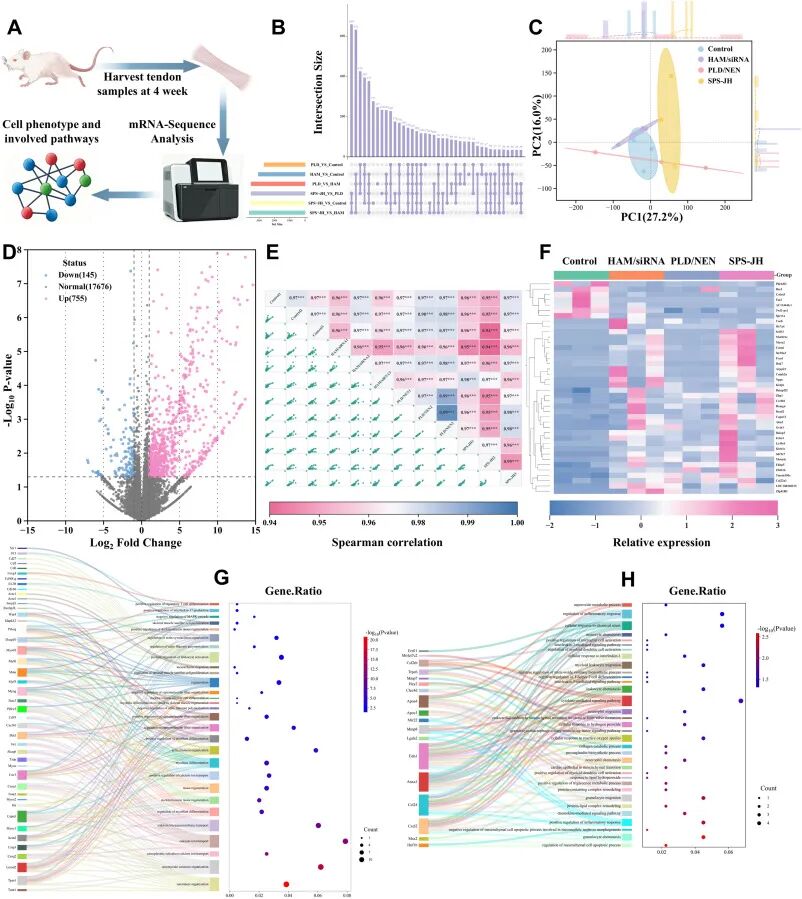
图8. mRNA-Sequence分析揭示SPS-JH介导肌腱修复的机制:(A) 术后4周修复肌腱组织的mRNA-Sequence分析(每组n=3个生物学重复);(B) Upset图显示组间差异表达基因的交集和并集;(C) PCA显示组间明显分离;(D) 组间Pearson相关系数热图;(E) 火山图显示组间上调基因(蓝色)和下调基因(红色);(F) 根据各组表达模式对DEGs进行热图聚类;(G-H) 与对照组相比SPS-JH组下调(G)和上调(H)基因的GO富集分析,使用Sankey图和气泡图可视化。
结论
该研究成功开发了一种基于自发相分离驱动的Janus水凝胶(SPS-JH),随后进行预交联和结构稳定化。外层HAM层在炎症期建立润滑微环境,有效减少肌腱运动引起的摩擦;此外,它响应局部病理微环境实现靶向基因沉默,从而防止肌腱与周围组织之间的粘连。相反,内层疏水性PLD基质由于其致密结构,在关键炎症-修复窗口实现NEN的持续可控释放,抑制病理性纤维化重塑同时促进内源性肌腱再生。体外和体内研究均表明,SPS-JH在炎症期有效沉默COX-2表达并抑制过度成纤维细胞活化;同时,NEN的持续释放促进巨噬细胞向抗炎M2表型极化,并在增殖期抑制纤维化进展,从而从根本上减轻肌腱粘连并防止病理性纤维化重塑。在大鼠肌腱损伤模型中,SPS-JH在减少腱周粘连、增强肌腱再生和恢复生物力学功能方面表现出优越疗效。具体而言,SPS-JH组粘连评分最低,Col-I表达在2和4周均高于其他组,而Col-III沉积显著低于HAM/siRNA和对照组;术后4周SPS-JH组AFI值为-3.31±1.99,显著优于对照组的-34.35±6.47和HAM/siRNA组的-23.55±3.20;SPS-JH组最大拉伸应力在所有手术组中最高,接近正常组水平,断裂应变也显著高于对照组。转录组学分析显示,SPS-JH组下调GO术语主要与炎症反应、氧化应激和纤维化过程相关(包括粒细胞趋化、炎症反应正向调节、趋化因子介导的信号通路和间充质细胞凋亡负调节),而上调基因主要富集于肌纤维结构、收缩和钙信号通路(包括肌节组织、肌动蛋白肌球蛋白结构组织、钙离子转运和成肌细胞分化调节);qRT-PCR验证显示SPS-JH组Nrap表达增加约1.8倍、Myh3约2.5倍、Acta1约3.2倍、Xirp2约2.8倍。总之,该自发相分离Janus水凝胶系统为肌腱损伤后功能性再生提供了一种有前景的治疗策略。作者也指出,未来研究可通过精确匹配不同组水凝胶的质量、体积和机械性能进一步阐明各组分的作用;此外,虽然本研究主要通过组织学评分评估腱周粘连程度,但未直接量化其机械强度,未来研究可通过测量术后4周将修复肌腱与周围粘连组织分离所需的力来进一步评估SPS-JH的抗粘连功效。