深度解析医学证据,lxfs.net为你支撑决策
红细胞微粒递送血红素,激活树突状细胞增强抗肿瘤
临床常用疫苗佐剂仍以铝盐为主,但铝盐倾向诱导Th2型CD4⁺T细胞反应,不利于肿瘤细胞杀伤所需的Th1反应和CD8⁺T细胞免疫;基于Toll样受体或cGAS-STING激动作用的合成佐剂(如CpG)虽可促进Th1相关免疫,却在安全性、可制造性、稳定性、有效性和耐受性方面存在挑战。与之不同,自体成分通常诱导免疫耐受,但结构、功能或位置改变可使自身分子作为损伤相关分子模式被树突状细胞等先天免疫细胞识别,从而增强肿瘤抗原向CD8⁺T细胞的呈递。红细胞数量多且富含以血红素形式存在的铁,红细胞来源微粒(EMPs)又携带大量血红素,因此研究者提出并验证了利用EMPs将血红素递送入DC细胞核、激活REV-ERBα以促进DC成熟的设想。
华中科技大学同济医学院基础医学院黄波教授、唐科教授课题组,经可控紫外线照射红细胞制备的EMPs可作为强效Th1偏倚佐剂,在体外和多种小鼠肿瘤模型中增强肿瘤抗原特异性细胞毒性T细胞反应。DC摄取EMPs后,微粒转运至溶酶体并递送血红素,血红素随后进入细胞核;机制上,EMPs提高溶酶体pH,促进溶酶体向细胞核移动并实现血红素转移,血红素激活REV-ERBα并形成共抑制复合物抑制PPARγ,从而解除对DC成熟和抗原呈递的抑制。将肿瘤抗原与EMPs联合接种可增强细胞毒性T细胞激活、抑制肿瘤生长且毒性极小,提示宿主来源囊泡可作为下一代癌症疫苗佐剂平台。相关成果以“Autologous erythrocyte microparticles drive antitumour T cell immunity via haem-mediated dendritic cell activation”为题发表在《Nature Biomedical Engineering》上。
研究首先用紫外线照射红细胞制备EMPs,表征显示其直径约180 nm(图1a,b)、每个红细胞可产生2—14个微粒(图1c),且只有紫外产生的EMPs能强烈激活DC;DC摄取后CD80、CD86、CCR7和MHC II上调(图1d),IFNα/β和IL-12升高(图1e),与肿瘤细胞裂解物联用可进一步增强DC成熟(图1f),足垫注射后引流淋巴结中CD11c⁺DC聚集(图1g)并功能性激活OVA特异性CD8⁺T细胞(图1h)。与MF59和铝盐相比,EMPs对DC成熟和T细胞启动明显更强(图1i–k);体内EMPs主要蓄积于肝脾并逐渐清除(图1l,m),虽被巨噬细胞和中性粒细胞摄取却不诱导其活化,高剂量处理4周未见体重、肝肾功能、造血干细胞、组织病理及炎症因子的明显异常。
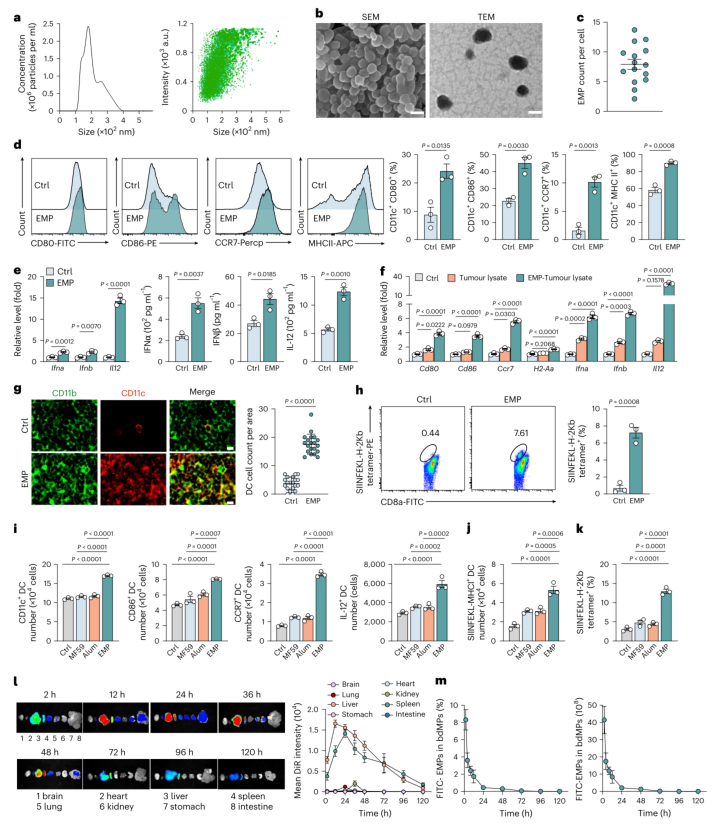
图1|EMPs促进DC成熟和抗原呈递。
在疫苗效力方面,研究用H22肝癌、B16黑色素瘤和Lewis肺癌裂解物联合EMPs进行预防性接种,再以肿瘤细胞攻击,发现裂解物单独保护作用有限,而加入EMPs后显著抑制肿瘤生长(图2a);在H22模型中还观察到50%小鼠保持无瘤。该保护作用在裸鼠(图2c)、CD8⁺T细胞清除(图2d)或DC清除后消失。OVA抗原联合EMPs可抑制OVA-B16肿瘤,但对B16肿瘤无明显影响(图2b);治疗性给予负载肿瘤裂解物和EMPs的DC可抑制已建立肿瘤(图2e),并在OVA-B16肺转移模型中减少转移、延长生存(图2f,g),伴随SINFELK四聚体⁺CD8⁺T细胞、IFNγ产生和细胞毒活性增加(图2h–j),并见记忆CD8⁺T细胞增加。瘤内注射EMP处理的DC同样抑瘤(图2k),且EMPs抗肿瘤效力优于临床批准的TLR9激动剂CpG 1018,二者联合具有协同效应。
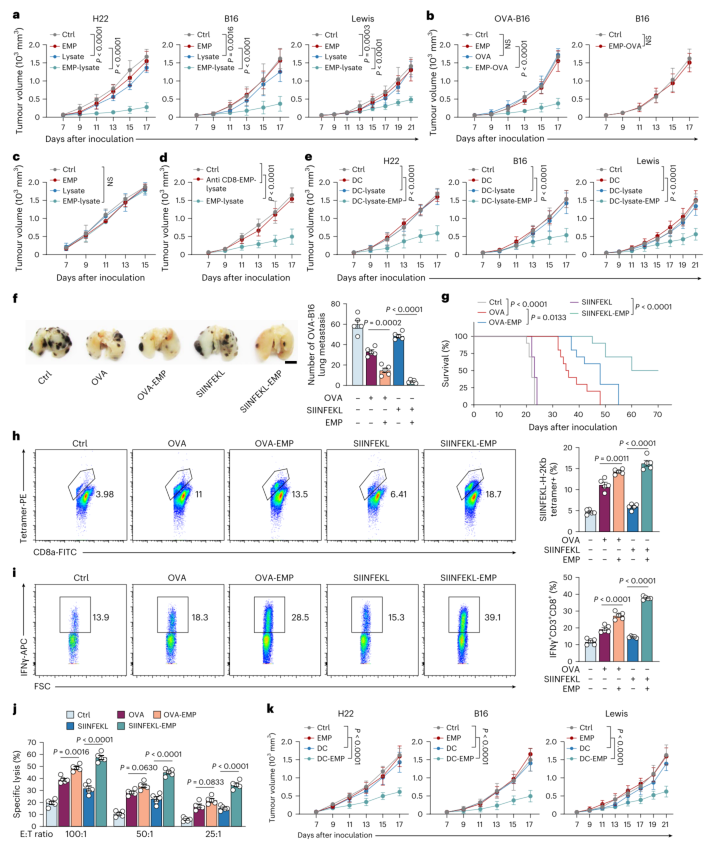
图2|EMPs增强DC疫苗在肿瘤模型中的效力。
为明确EMPs中的关键活性成分,研究比较了脾细胞来源微粒、肝细胞来源微粒和EMPs,尽管三者均可被DC摄取,但只有EMPs能刺激DC成熟和CD8⁺T细胞启动(图3a,b);LC-MS显示EMPs中血红素极高,而SMPs或HMPs中很少(图3d,e),EMPs而非SMPs/HMPs使DC血红素水平升高(图3f)。将EMP裂解物或hemin与脾细胞/肝细胞孵育制备的微粒可获得刺激DC成熟和CD8⁺T细胞启动的能力(图3g–j),并增加DC血红素(图3k,l);用HO-1预处理促进血红素降解后效应被取消(图3m,n)。超声裂解或Triton X-100处理破坏EMPs后其佐剂活性丧失(图3o,p),外源hemin、红细胞或纯化血红蛋白单独均不能明显促进DC成熟,说明完整EMPs的囊泡结构对递送血红素至关重要。
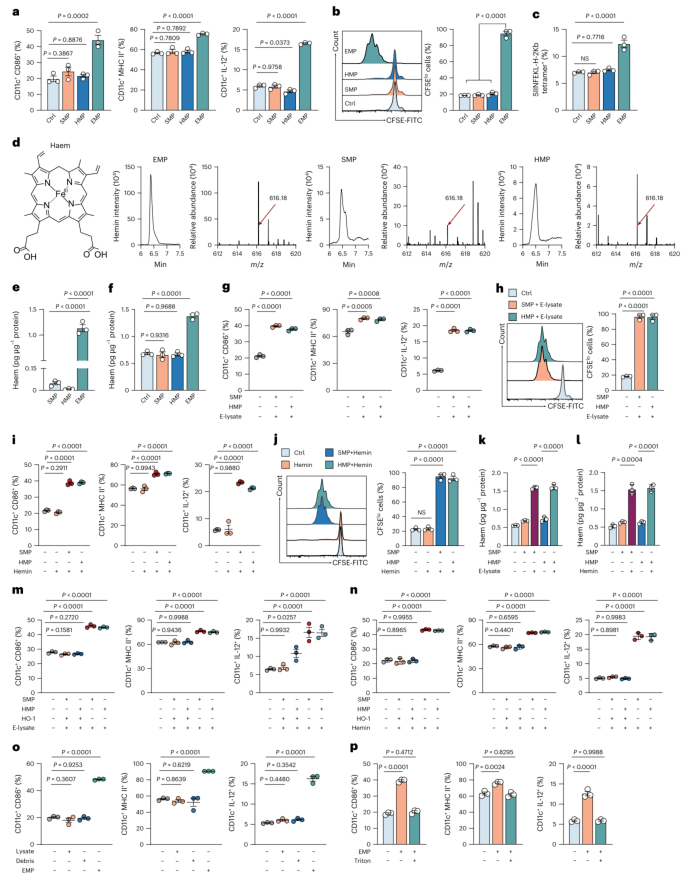
图3|血红素对EMPs作为DC疫苗佐剂至关重要。
机制上,敲低/沉默Rev-erbα而非Rev-erbβ会破坏EMPs的佐剂效应(图4a,b);免疫沉淀和LC-MS显示EMP处理DC中REV-ERBα与血红素结合(图4c),而REV-ERBα结合血红素所需的C419和H603位点突变后EMPs作用消失(图4d,e)。REV-ERBα拮抗剂SR8278阻断EMPs效应(图4f),REV-ERBα激动剂SR9009则促进DC成熟和抗原呈递(图4g);过表达Rev-erbα同样促进DC成熟并抑制肿瘤生长(图4h–j),而过继转移Rev-erbα敲低且经OVA肽和EMPs预处理的DC不能抑制OVA-B16肿瘤生长(图4k),表明血红素通过靶向REV-ERBα介导DC成熟和抗原呈递。
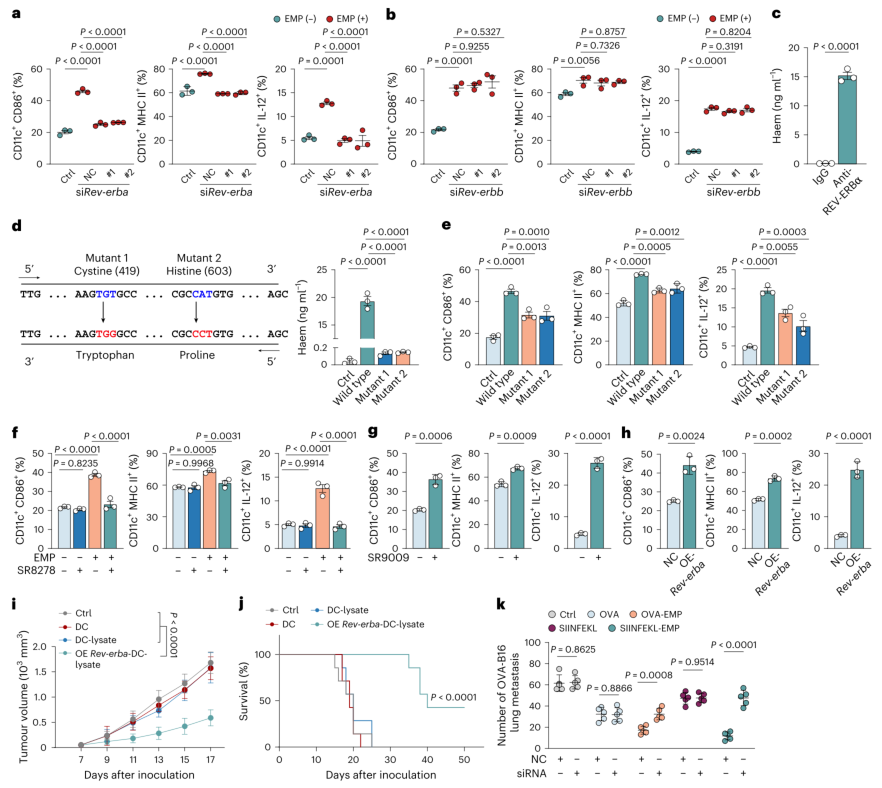
图4|EMPs利用血红素靶向REV-ERBα发挥佐剂效应。
进一步通过ChIP-seq鉴定REV-ERBα直接靶基因(图5e),并聚焦于PPARγ位点(图5f);EMP处理DC中PPARγ及其靶基因Ap2显著下调(图5g,h),而REV-ERBα、HDAC3或NCOR1敲低可逆转这一下调(图5i,j),强制过表达PPARγ则阻断EMPs对DC成熟和抗原呈递的促进作用。在H22、Lewis和B16荷瘤小鼠中,肿瘤浸润DC高表达PPARγ和Ap2,瘤内注射EMPs可逆转(图5k);REV-ERBα抑制剂SR8278或HDAC3抑制剂RGFP966可解除EMP介导的PPARγ抑制(图5l,m)。PPARγ失活还导致DC脂质水平降低、氧消耗率下降和细胞外酸化率升高(图5n,o),PPARγ激动剂罗格列酮可逆转这些代谢变化(图5p,q),说明血红素-REV-ERBα通过转录抑制PPARγ改善DC活化。
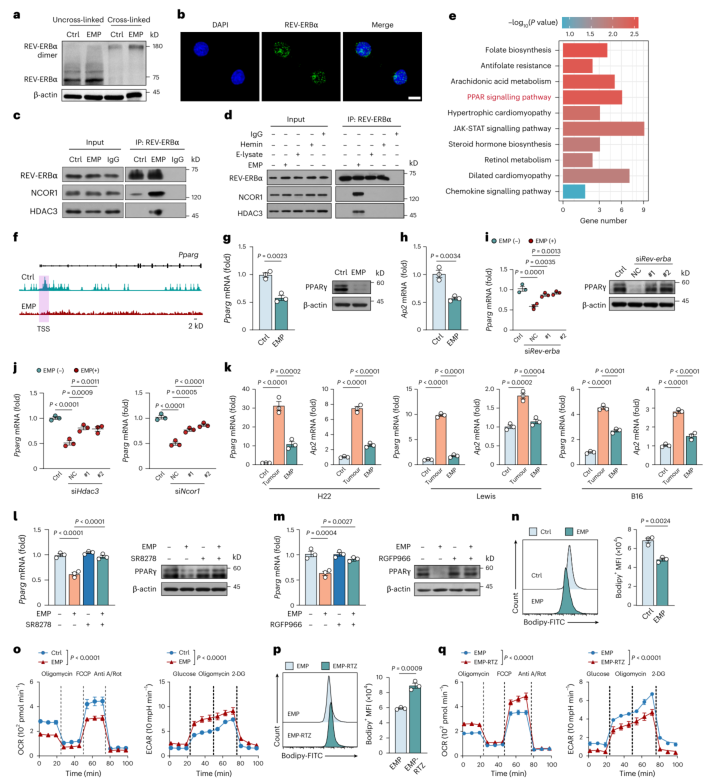
图5|EMP诱导的REV-ERBα在DC中靶向PPARγ。
在递送路径方面,EMP处理DC中胞质血红素逐渐减少而核内血红素随时间增加(图6a),荧光显微镜显示EMPs主要位于DC溶酶体(图6b);EMP处理后溶酶体与细胞核距离缩短,Rab7或dynein敲低可取消这一缩短(图6c),而CQ、BFA或NH4Cl提高溶酶体pH可增强溶酶体向心迁移(图6d)。EMP处理本身也提高溶酶体pH(图6e),与上述药物联合可进一步提高pH;同时伴随核内更多血红素蓄积和更少胆绿素。NOX2抑制剂DPI或Nox2敲低取消EMP引起的溶酶体pH升高(图6f,g),HRG1敲低(图6h,i)或verapamil处理(图6j)则降低核内血红素并削弱EMPs对DC的作用,表明EMPs通过提高溶酶体pH促使溶酶体向核迁移,再将血红素泵出并转入细胞核。
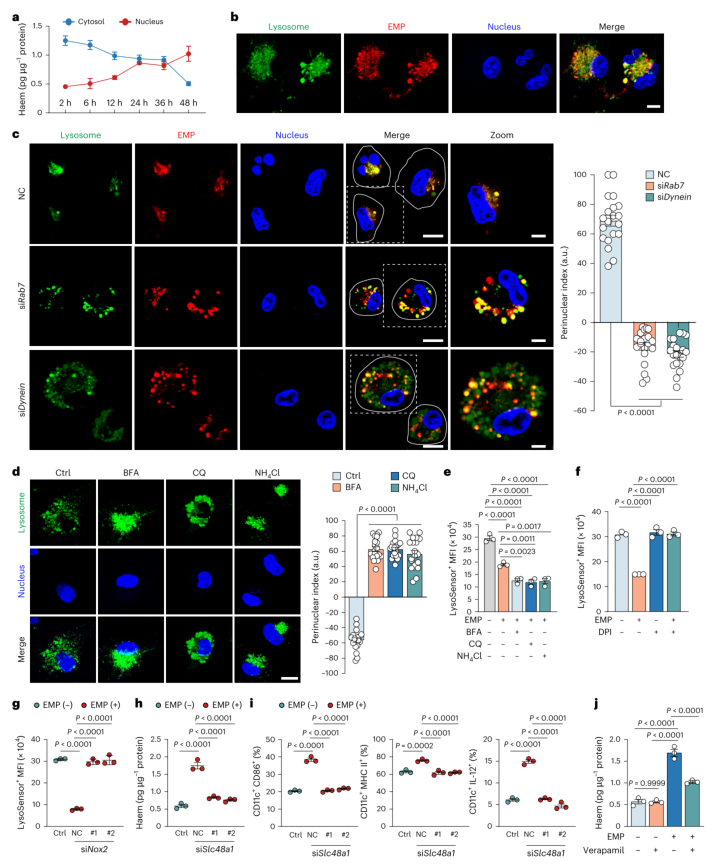
图6|EMPs将血红素运送至细胞核以结合DC中的REV-ERBα。
在人体相关实验中,人红细胞来源EMPs直径100—400 nm、峰值约150 nm(图7a),每个红细胞释放约6个hEMPs(图7b);hEMPs可促进人DC成熟并上调CD80、CD86、MHC II、CCR7(图7c)及IFNα、IFNβ、IL-12(图7d),使核内血红素积累(图7e),并促使REV-ERBα与NCOR1、HDAC3形成共抑制复合物(图7f)、下调PPARγ(图7g,h);REV-ERBα敲低可逆转PPARγ下调(图7h),并取消hEMPs对人DC成熟和细胞因子产生的影响(图7i)。hEMPs还提高人DC溶酶体pH并驱动溶酶体向核中心移动(图7j,k),小鼠或大鼠来源EMPs处理人DC也得到相似结果(图7l)。在A375人黑色素瘤裸鼠模型中,共转移hEMP处理DC和人CD8⁺T细胞而非未处理DC可抑制肿瘤生长(图7m,n),瘤内DC的CD80和IL-12升高、CD8⁺T细胞TNF-α和颗粒酶B升高(图7o),并延长荷瘤小鼠生存(图7p)。
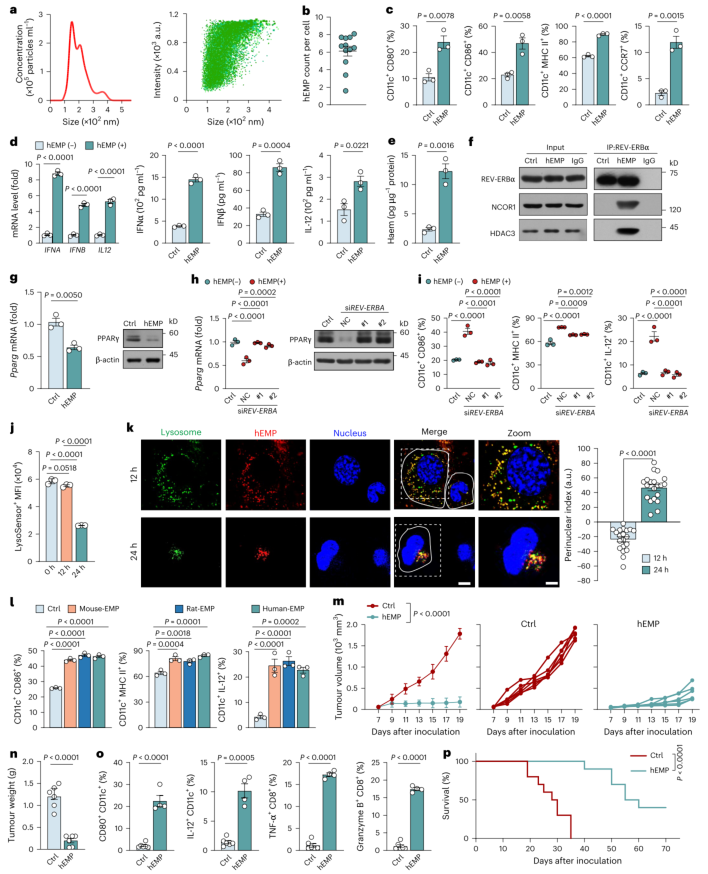
图7|EMPs激活人DC以改善抗肿瘤免疫。
小结,EMPs由UVB照射产生,经溶酶体转运提高溶酶体pH后,将血红素递送至细胞核,血红素激活REV-ERBα并与NCOR1、HDAC3形成共抑制复合物,抑制PPARγ,从而促进DC成熟、抗原交叉呈递和CD8⁺T细胞有效激活,最终控制肿瘤;缺乏该过程时交叉呈递不足、T细胞激活无效、肿瘤控制失败(图8)。总体而言,该研究证明EMPs作为红细胞来源自体成分,可在预防和治疗设置中作为Th1佐剂激活抗肿瘤免疫;其作用不依赖模式识别受体,而依赖REV-ERBα-PPARγ轴,完整囊泡结构可保护血红素并避免其被HO-1降解或被TLR4等识别。EMPs具有较好的生物相容性、靶向特异性和较长半衰期,效力优于CpG 1018且可与其协同,支持其作为癌症疫苗佐剂进入后续临床探索;未来仍需解决长期储存中保持或增强其生物活性等问题。
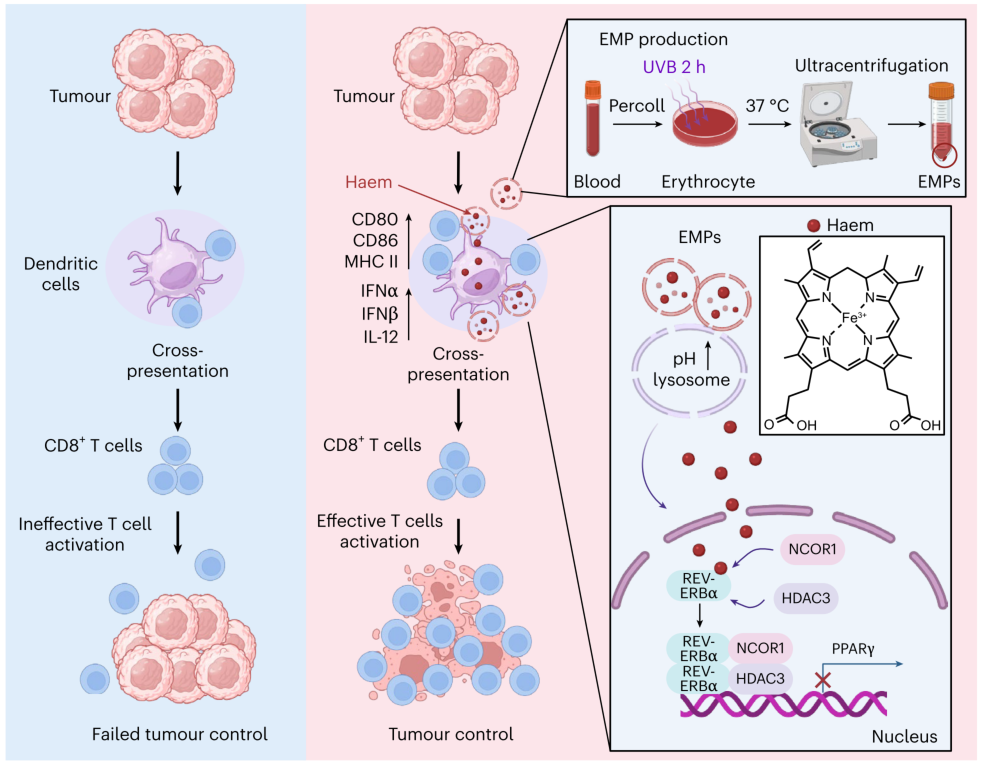
图8|EMPs促进DC成熟的示意图。