深度解析医学证据,lxfs.net为你支撑决策
特应性皮炎(AD)是一种全球范围内高发的慢性炎症性皮肤病,反复发作的剧烈瘙痒让患者苦不堪言,严重影响生活质量。目前临床常用的糖皮质激素、调节剂、抗组胺药等虽能部分缓解症状,却常伴随皮肤萎缩、屏障受损、耐药等问题。
近年来,中药汤剂中自组装纳米粒因其良好的临床转化前景而备受关注。黄连作为传统清热燥湿药,其主要活性成分小檗碱等生物碱具有明确的抗炎、抗菌和免疫调节作用,但这类成分透皮性差,限制了外用疗效。更棘手的是,传统汤剂中“提取”与“组装”同时进行,导致纳米粒稳定性差、粒径不均,疗效难以预测。为此,研究者提出了一种“可控组装”策略——先以盐酸水溶液提取黄连活性成分,再通过pH驱动组装,构建出结构稳定、粒径可控的黄连自组装纳米粒(CR-SAN),并系统评价了其理化性质、透皮性能及抗AD作用机制。
论文首图
制备与表征及CR-SAN的安全性评估
研究团队将黄连饮片以0.3%盐酸水溶液浸泡并回流提取,浓缩后调节pH至7.0,成功制得CR-SAN。透射电镜和扫描电镜显示,CR-SAN呈球形,内部电子密度高、结构紧实,平均粒径为234.9±5.1 nm,多分散系数为0.21±0.03,Zeta电位为-28.1±3.9 mV,提示其具有良好的胶体稳定性(图1A-B)。与pH-CR相比,CR-SAN的XRD图谱未见明显晶型改变,但热重分析显示其热降解过程更集中、起始温度更高,说明自组装显著提升了热稳定性(图1C-E)。傅里叶变换红外光谱中,1720 cm⁻¹处羰基吸收峰完全消失,羟基峰红移至3412 cm⁻¹,芳香环振动峰也发生位移,提示氢键和π-π堆积作用参与了自组装过程(图1F)。包封率结果进一步表明,生物碱并非游离存在于溶液中,而是参与了纳米粒的组装。安全性方面,小鼠心、肝、脾、肺、肾H&E染色未见明显病理改变,血清ALT、AST、CRE、BUN水平无统计学差异,说明CR-SAN具有良好的生物安全性(图1G-H)。
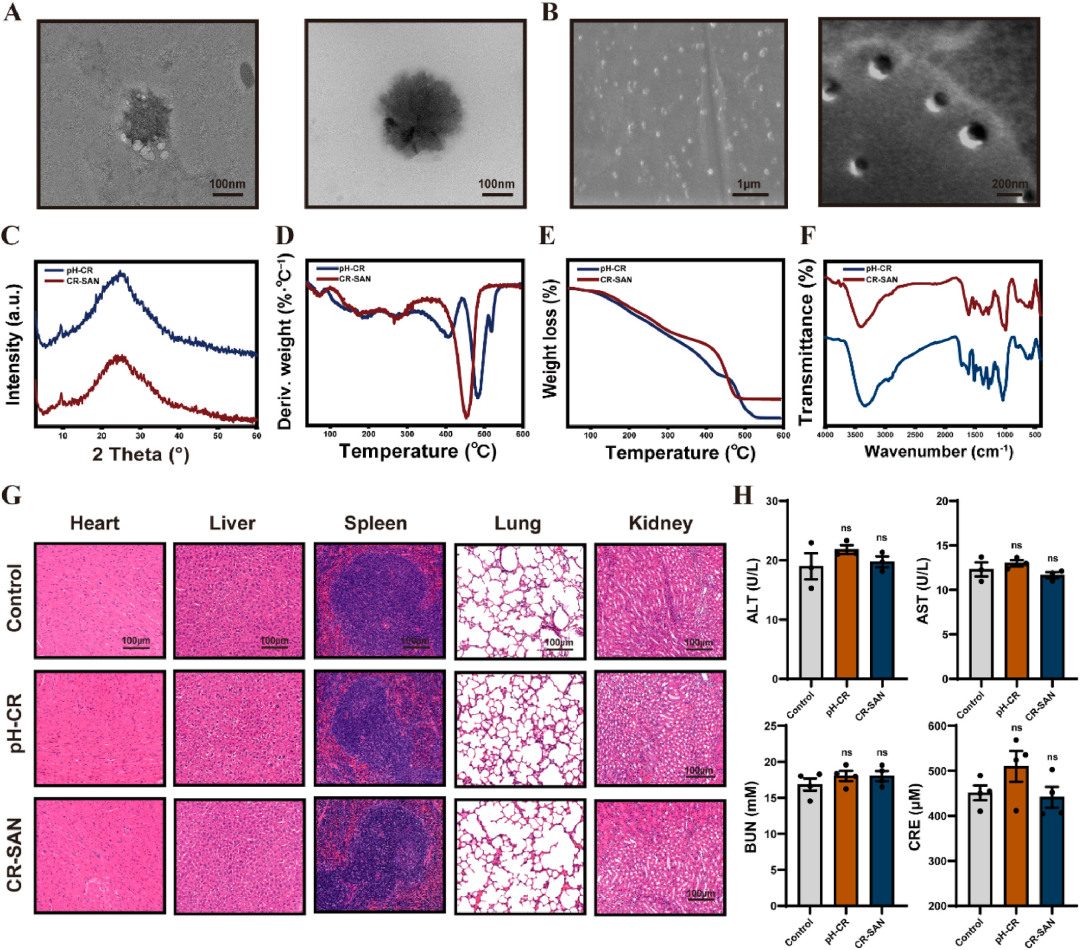
图1
CR-SAN增强体外渗透与滞留
透皮性能是外用制剂成败的关键。研究采用Franz扩散池评估CR-SAN的经皮渗透与皮肤滞留能力。结果显示,高浓度CR-SAN(CR-SAN-H)中小檗碱的皮肤滞留量分别是低、中浓度组的1.83倍和1.92倍,黄连碱、表小檗碱和巴马汀的滞留量也显著升高(图2A)。24 h累积透皮量方面,CR-SAN-H中小檗碱的透过量分别是CR-SAN-L和CR-SAN-M的4.00倍和4.63倍(图2B-E)。机制上,FTIR显示处理后皮肤角质层脂质的CH₂不对称和对称伸缩振动峰(2920、2850 cm⁻¹)以及角蛋白酰胺I、II峰(1640、1520 cm⁻¹)强度均下降,提示CR-SAN可影响脂质排列并改变角蛋白二级结构(图2F)。DSC分析中,角质层脂质相变峰明显左移,说明脂质有序结构被破坏(图2G)。SEM图像则直观显示,CR-SAN处理后皮肤表面皱褶增多、粗糙度增加并出现裂隙,且随浓度和时间延长而加剧(图2H)。这些结果说明,CR-SAN通过“松土”式地破坏角质层致密结构,为活性成分渗透和滞留打开了通道。
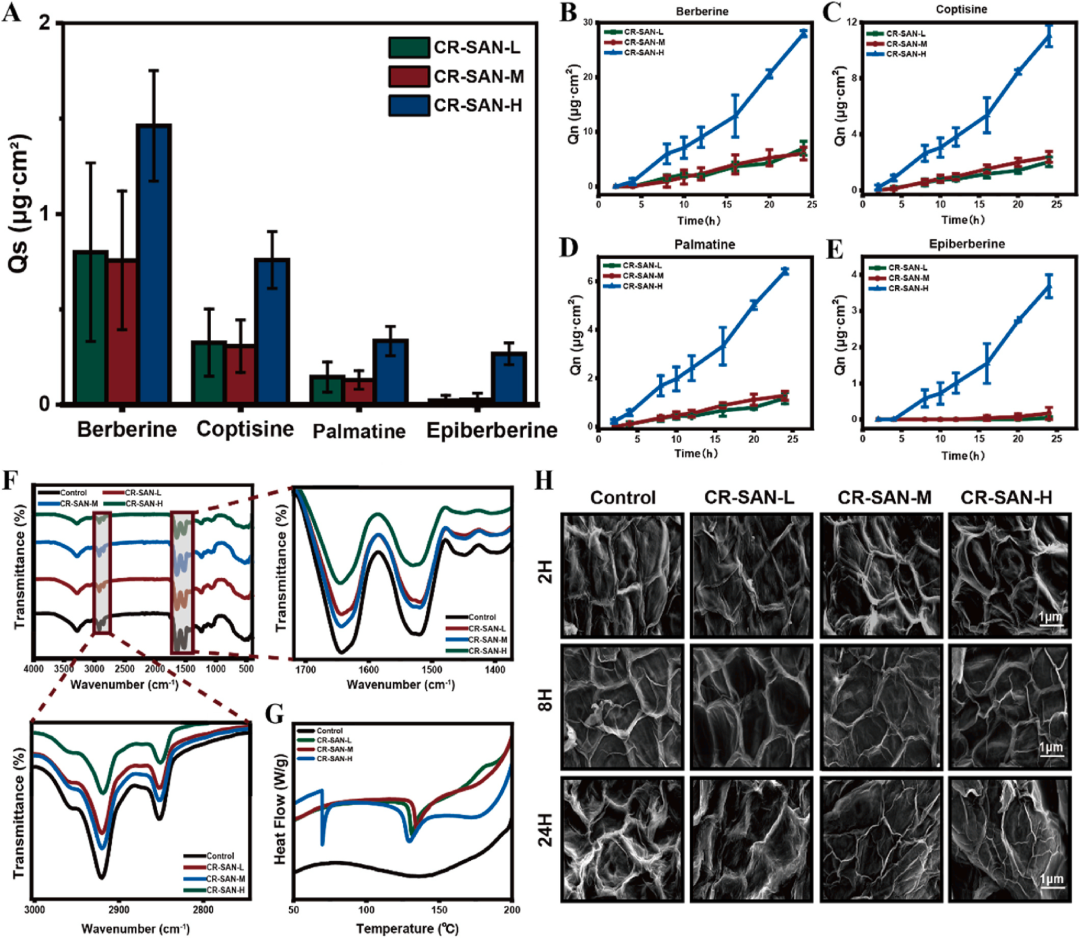
图2
CR-SAN改善DNCB诱导的小鼠AD样症状
在DNCB诱导的AD样小鼠模型中,模型组出现典型的红斑、鳞屑、糜烂和渗出,而CR-SAN治疗组症状明显减轻(图3B)。15天内体重变化和皮炎评分显示,CR-SAN干预有效遏制了病情进展(图3C)。血清学检测发现,CR-SAN显著抑制了IgE水平以及IL-1β、TNF-α、IL-6等促炎细胞因子(图3D-F)。组织病理学显示,CR-SAN组表皮和真皮厚度明显减少,效果与地塞米松组相当(图3G)。此外,CR-SAN还显著提高了血清总超氧化物歧化酶(SOD)水平,降低了丙二醛(MDA)和活性氧(ROS)水平(图3H-I)。这些结果表明,CR-SAN通过减轻免疫细胞浸润和氧化应激,多环节改善AD皮损。
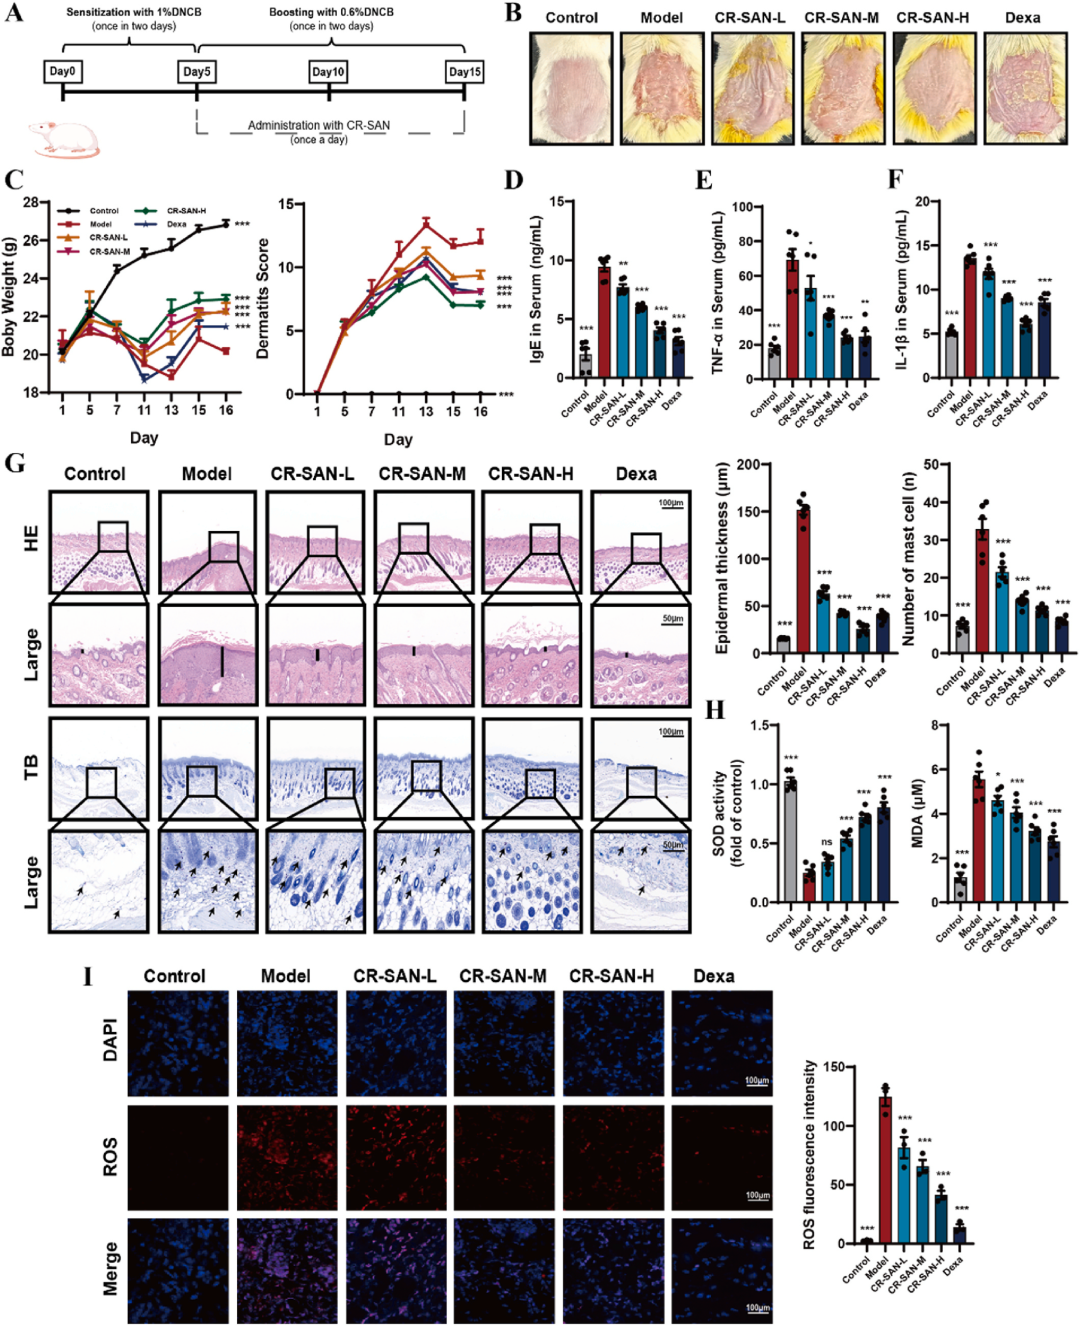
图3
靶向NLRs信号通路的网络药理学和转录组分析结果
为了揭示CR-SAN抗AD的分子机制,研究对AD小鼠皮损进行了转录组测序。主成分分析显示各组转录谱差异明显(图4A)。与对照组相比,模型组有2118个差异表达基因,其中1739个上调、379个下调(图4B);CR-SAN组与模型组相比有766个差异基因,532个上调、234个下调(图4C)。GO和KEGG富集分析提示,CR-SAN的作用与NLRs信号通路密切相关(图4D-E)。网络药理学与转录组联合分析进一步锁定NLRs通路为CR-SAN的核心靶点(图4F)。RT-qPCR验证显示,CR-SAN显著下调了Nlrp3、Pycard、Caspase-1、Gsdmd及IL-33等关键基因的表达(图4G-N)。
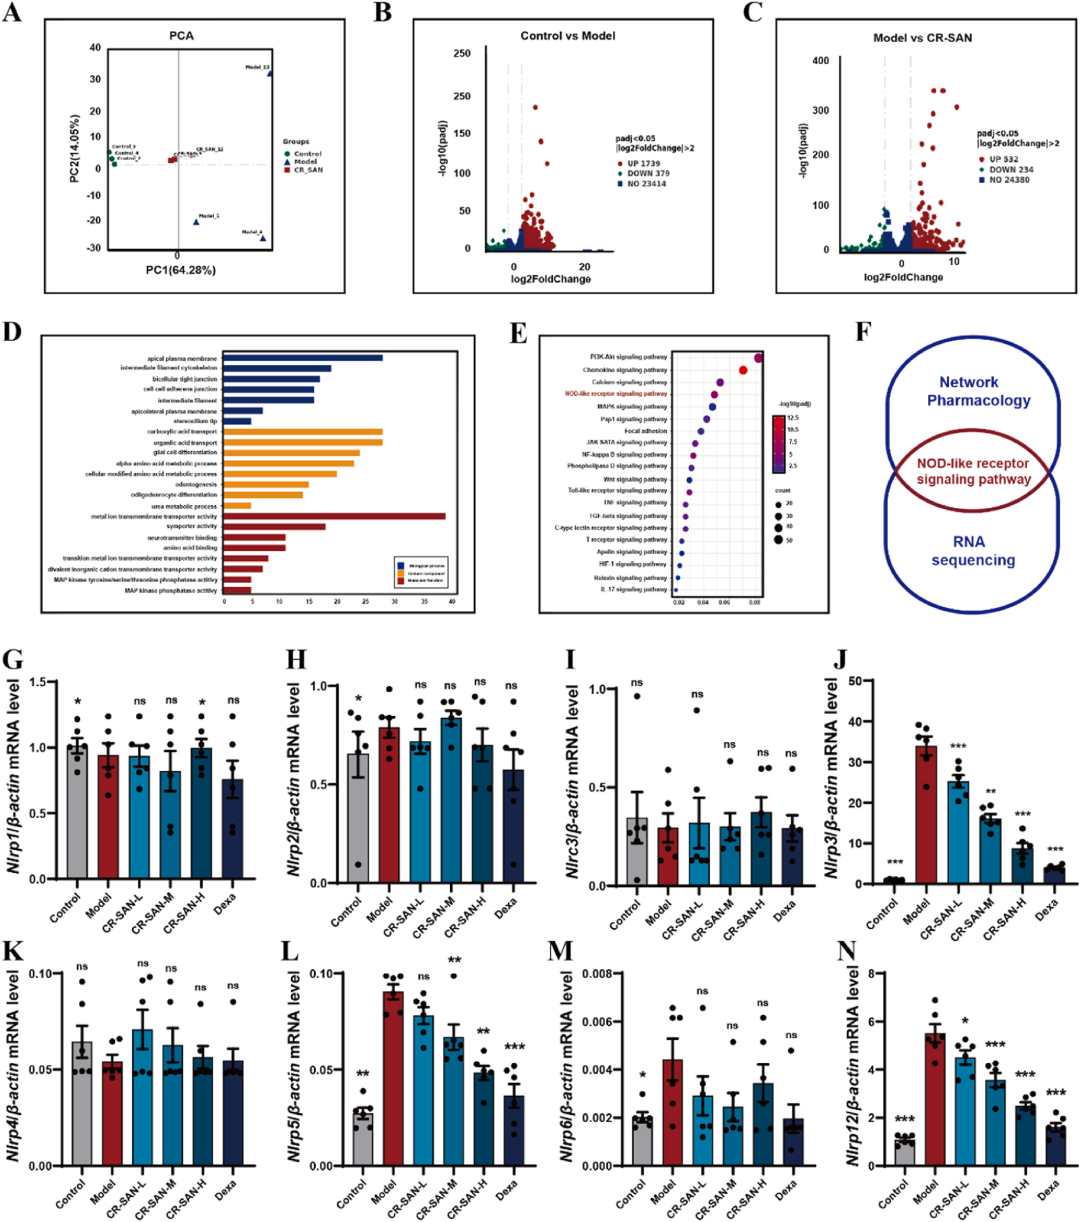
图4
CR-SAN通过NLRP3/GSDMD-IL-33轴改善AD小鼠皮肤炎症损伤
NLRP3炎症小体激活是AD炎症反应的重要推手。研究检测了DNCB诱导皮损中Nlrp3、Pycard、Caspase-1和Gsdmd的mRNA水平,模型组显著升高,而CR-SAN治疗组明显回落(图5A)。IL-33作为一种主要定位于上皮细胞核内的警报素,在GSDMD介导的细胞焦亡过程中被动释放,研究据此推测NLRP3/GSDMD-IL-33轴可能是AD瘙痒和抓挠的核心驱动因素。结果显示,CR-SAN显著降低了IL-33 mRNA表达(图5B),并下调了Tnf-α、IL-6和IL-4等炎症因子(图5C)。免疫组化显示,CR-SAN组NLRP3和Caspase-1蛋白表达低于地塞米松组和模型组(图5D)。Western blot进一步验证了NLRP3、ASC、Caspase-1、GSDMD和IL-33蛋白表达呈剂量依赖性下降(图5E)。这些数据表明,CR-SAN通过调控NLRP3/GSDMD-IL-33轴,切断了AD炎症损伤的关键环节。
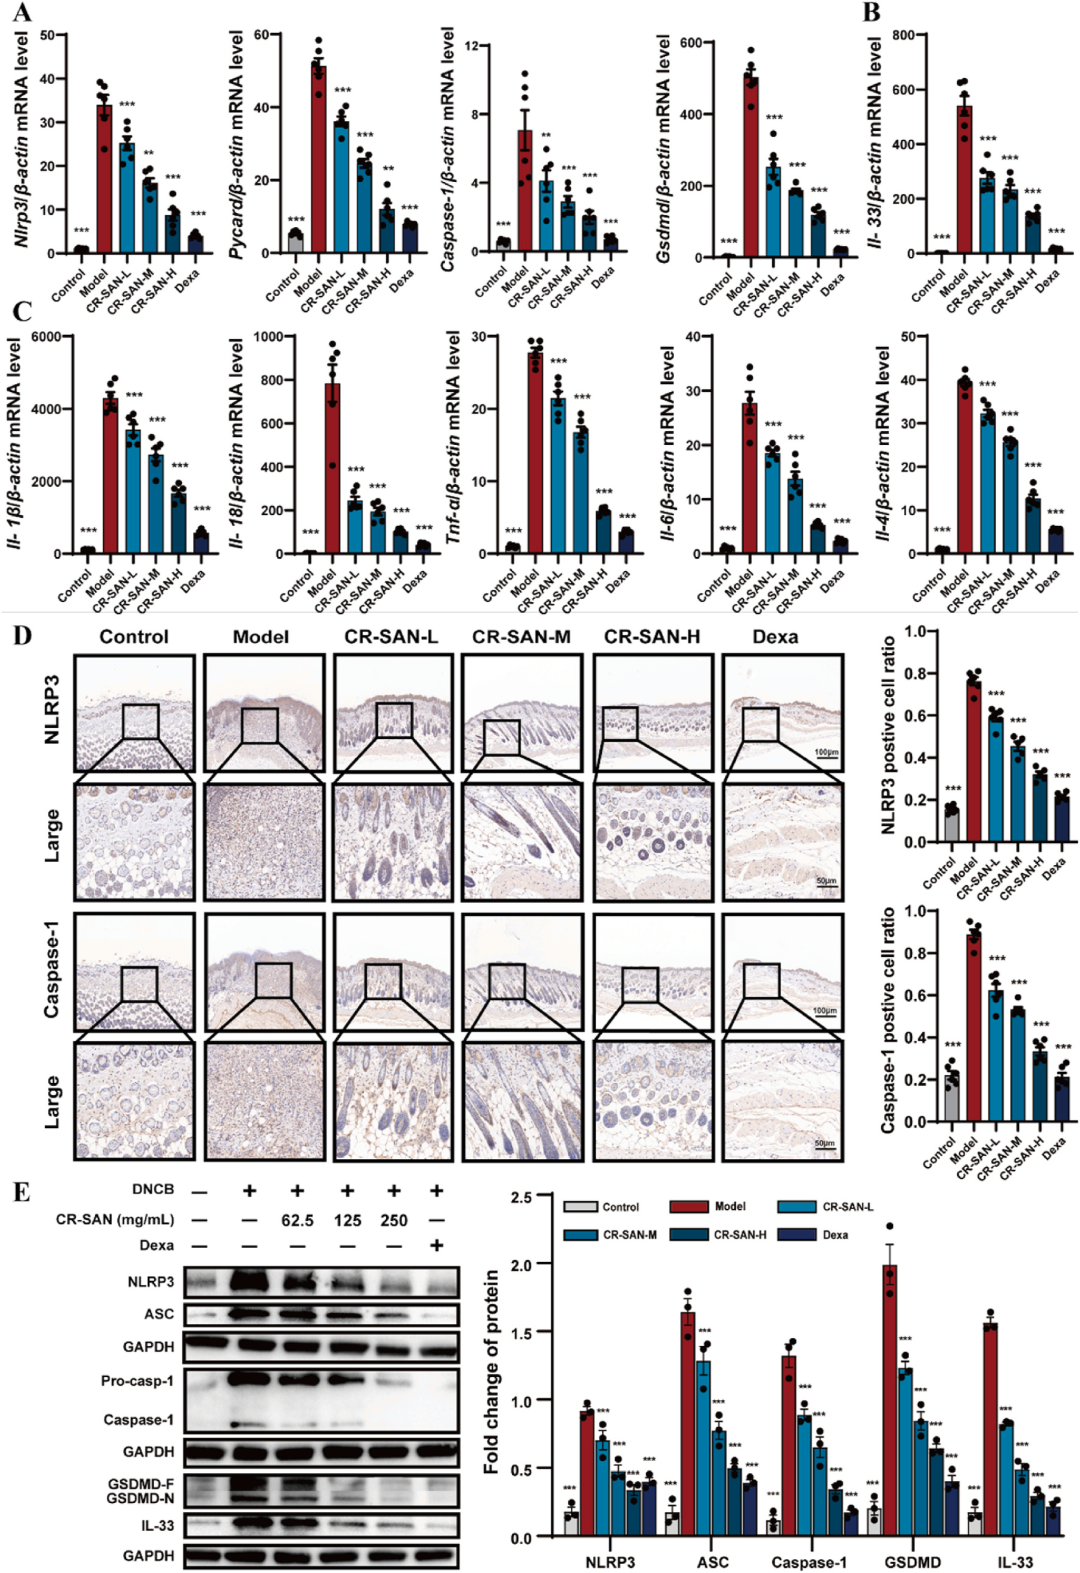
图5
CR-SAN减轻脂多糖诱导的体外细胞损伤和氧化应激
在体外实验中,CR-SAN在HaCaT、BMDMs和RAW264.7细胞中均表现出良好的生物安全性。以LPS刺激巨噬细胞模拟AD炎症环境,CR-SAN剂量依赖性地降低了NO和LDH释放(图6A-C),同时提高SOD活性、降低MDA水平(图6D)。DCFH-DA染色和流式细胞术一致显示,CR-SAN显著抑制了LPS诱导的细胞内ROS生成(图6E-F)。其中200 μg/mL被确定为后续机制研究的最佳浓度。这些结果说明,CR-SAN能有效保护巨噬细胞免受炎症损伤,并缓解氧化应激。
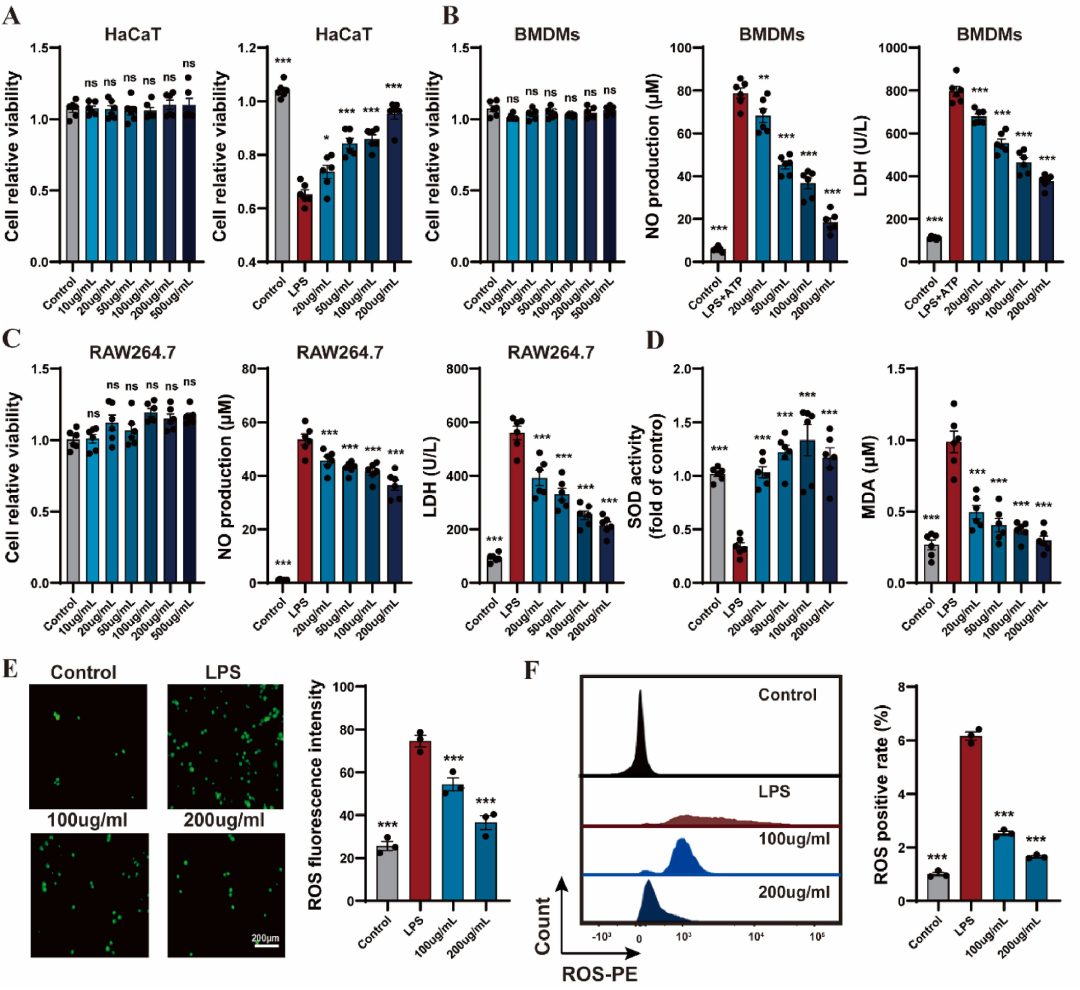
图6
si-Nlrp3部分消除了CR-SAN对LPS诱导巨噬细胞的保护作用
线粒体功能障碍和NLRP3炎症小体组件的组装是炎症小体激活的重要标志。研究采用si-Nlrp3敲低NLRP3表达后,发现si-Nlrp3本身可部分降低NO、LDH和MDA释放,并提高SOD和ATP水平(图7A-E)。Mito-Tracker和Mito-SOX染色显示,LPS刺激导致线粒体ROS升高,而CR-SAN可降低线粒体超氧阴离子水平(图7F)。免疫荧光和Western blot结果显示,CR-SAN能减少NLRP3和ASC表达,但si-Nlrp3削弱了这种抑制效果(图7G-H)。换句话说,当NLRP3被“关掉”后,CR-SAN的部分保护作用也随之减弱,这从反向验证了NLRP3是CR-SAN发挥作用的关键靶点。
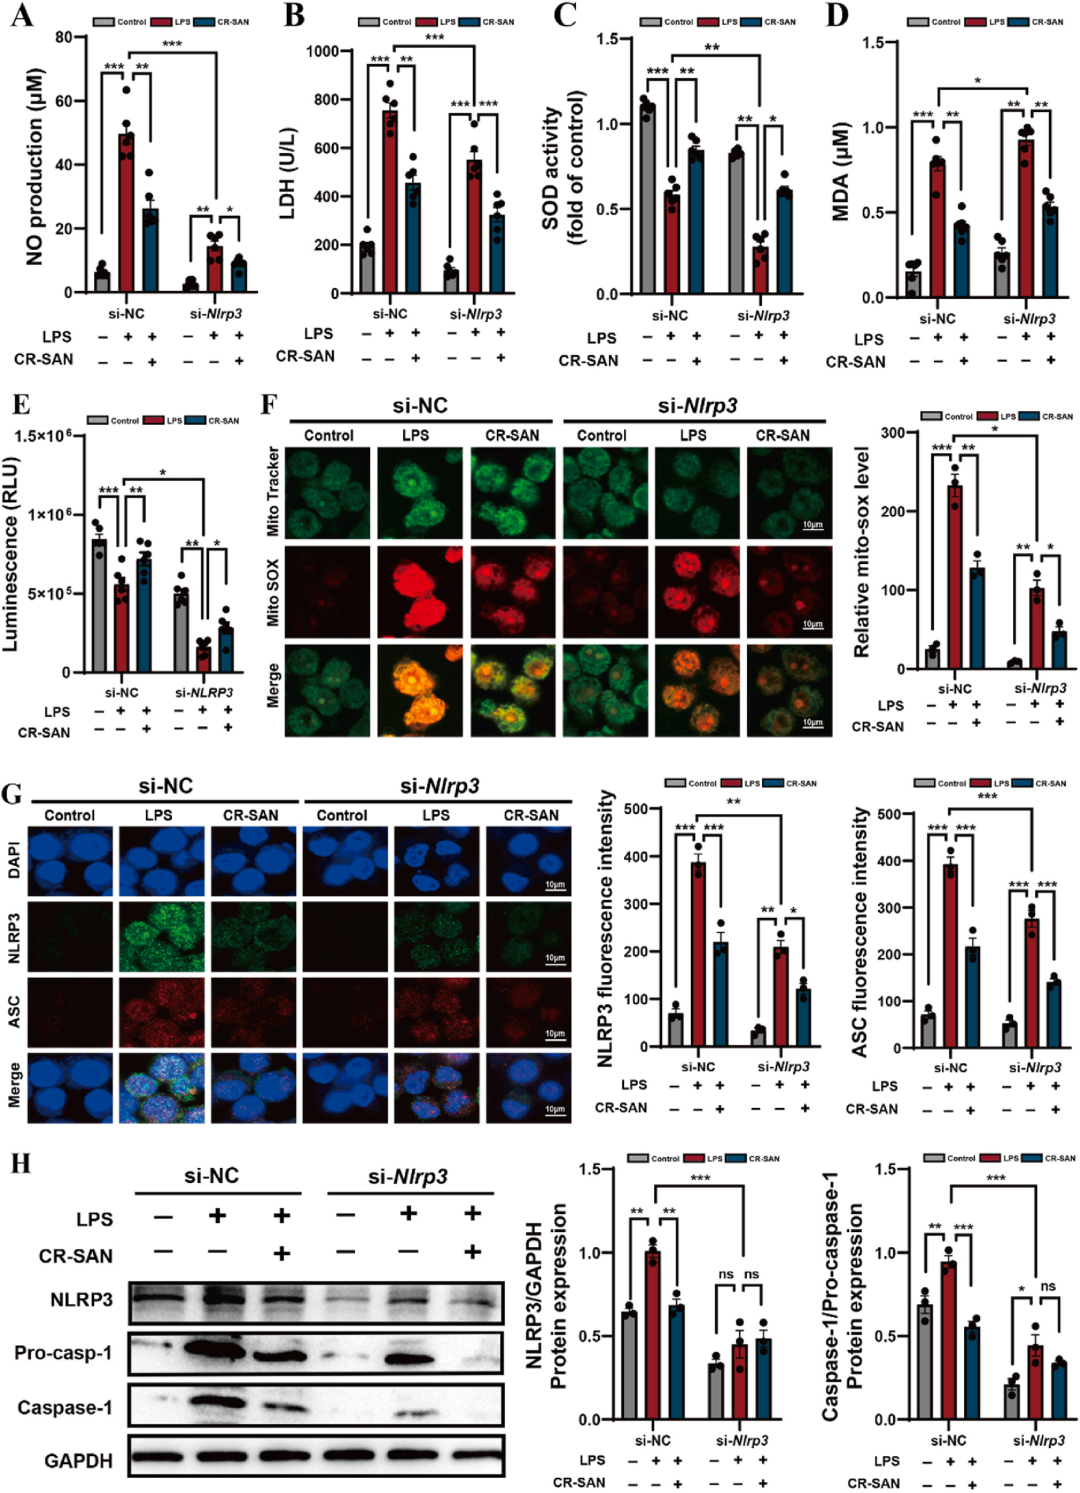
图7
CR-SAN通过靶向NLRP3炎症小体组装破坏特应性皮炎中的瘙痒-抓挠循环
ASC寡聚化是NLRP3炎症小体组装的关键步骤。研究以NLRP3抑制剂MCC950为阳性对照,发现200 μg/mL CR-SAN可显著抑制LPS/ATP诱导的BMDMs中ASC寡聚化(图8A),并降低Caspase-1活性(图8B)。Co-IP实验显示,CR-SAN明显减少了NLRP3与ASC/Caspase-1之间的相互作用(图8C)。鉴于CR-SAN成分复杂,研究者采用UHPLC-ESI-QE-Orbitrap-MS鉴定出169种植物化学成分(表S3),并选取小檗碱、黄连碱、表小檗碱和巴马汀进行分子对接。结果显示,这些生物碱与NLRP3的结合能分别为-9.4、-9.1、-8.9和-7.6 kcal/mol,其中小檗碱和黄连碱亲和力最强(图8D-E)。分子动力学模拟进一步验证了结合的稳定性(图8F)。这些发现提示,CR-SAN中的多种生物碱可能通过协同作用,直接干预NLRP3炎症小体的组装,从而打破“瘙痒-抓挠-屏障破坏”的恶性循环。
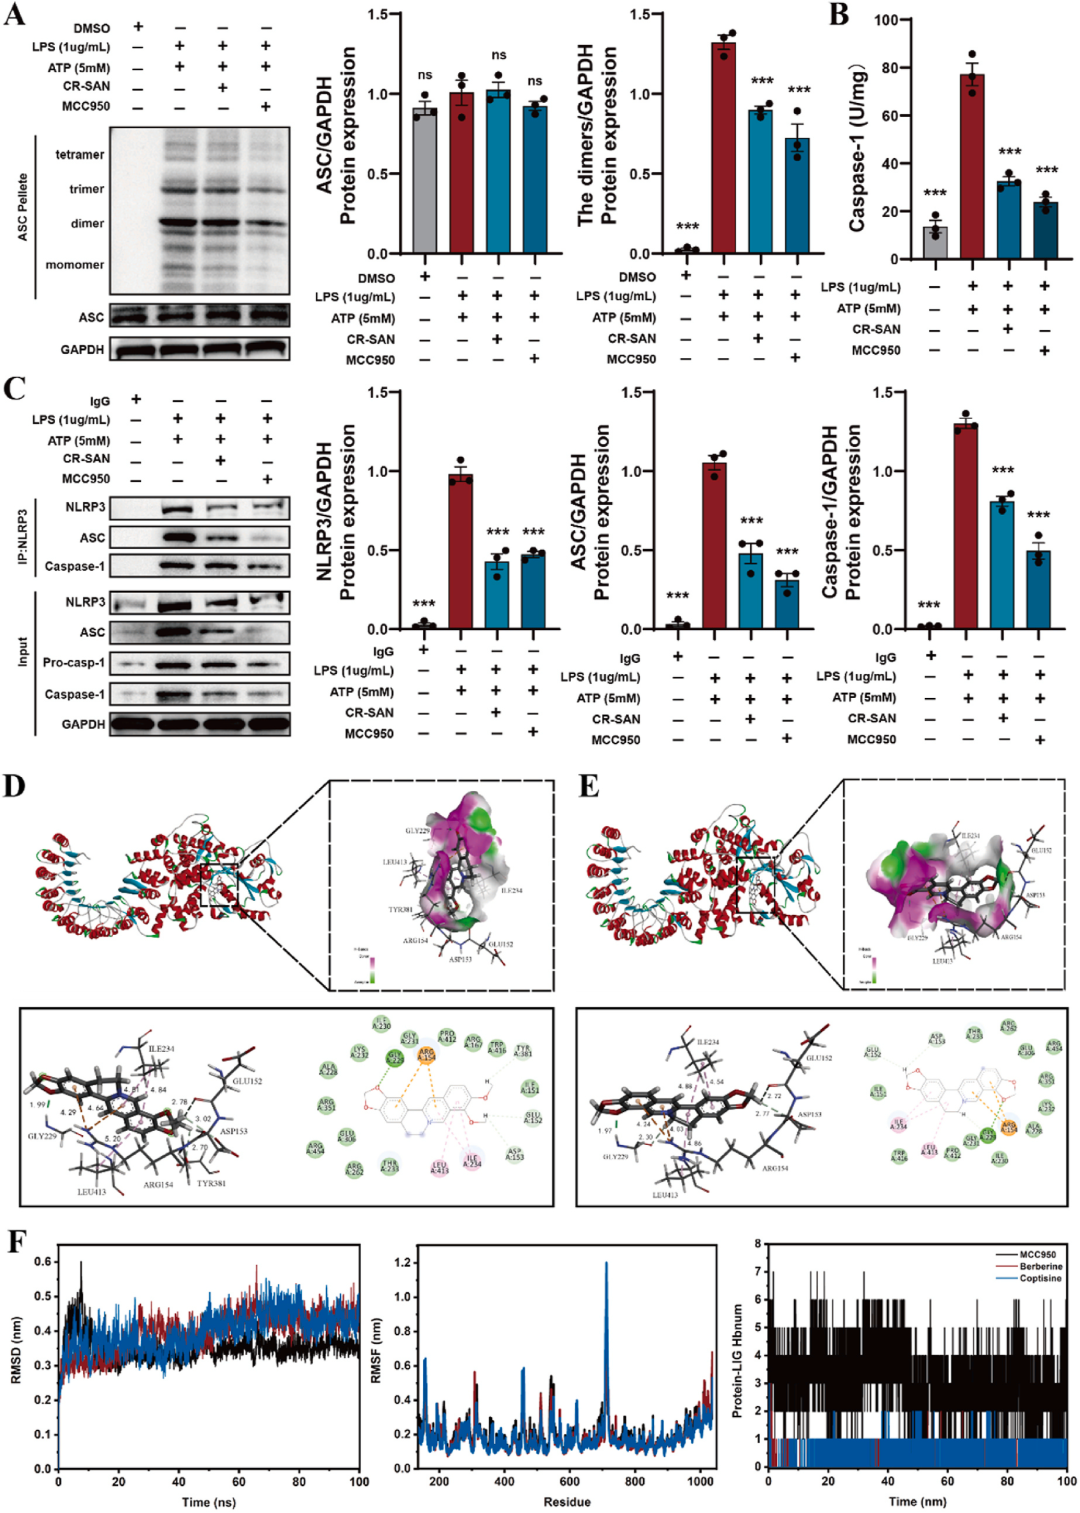
图8
小结
这项研究以“可控组装”策略成功构建了黄连自组装纳米粒CR-SAN,使其粒径更均一、稳定性更好、透皮性能更优。CR-SAN不仅能有效缓解AD小鼠的皮损和炎症,还通过抑制NLRP3炎症小体组装、阻断GSDMD-IL-33轴,从源头干预瘙痒-抓挠循环。对于临床医生而言,这项研究提供了一个值得关注的信号:中药自组装纳米粒并非“黑箱”,通过工艺优化和机制阐明,完全可以实现质量可控、靶点明确、疗效可期。未来,随着更多类似研究的积累,中药纳米制剂有望成为AD等慢性炎症性皮肤病治疗的新选择。
参考文献:Song, Rui et al. “A "controlled assembly" strategy for constructing Coptidis Rhizoma self-assembled nanoparticles to ameliorate inflammatory damage in Atopic dermatitis.” Bioactive materials vol. 56 234-247. 22 Oct. 2025, doi:10.1016/j.bioactmat.2025.10.010