深度解析医学证据,lxfs.net为你支撑决策
急性(AIS)是致死致残率极高的全球性健康难题,脑缺血后神经元大量死亡,这些“尸体”若不能被及时清理,会释放损伤相关分子模式(DAMP),进一步点燃神经炎症的“熊熊烈火”。小胶质细胞本是脑内负责清理垃圾的“清道夫”,但在卒中后其吞噬和降解功能常常掉链子,导致死亡/濒死神经元堆积,炎症迁延不愈。近年来,趋化素样因子1(CKLF1)被发现在卒中后由神经元大量分泌,它一方面把小胶质细胞招募到缺血半暗带,另一方面却破坏其溶酶体功能,让吞噬进来的“垃圾”降解不掉,堪称炎症恶性循环的“帮凶”。
三七总皂苷(PNS)是临床上广泛用于缺血性卒中的中药制剂,其抗炎和减少神经元死亡的作用已被证实,但能否通过增强小胶质细胞的清除能力来“釜底抽薪”,其分子靶点一直不清楚。正是在这样的背景下,中国医学科学院药物研究所团队开展了这项研究,试图从三七总皂苷中“钓”出能够抑制CKLF1的天然小分子,并阐明其促进死亡/濒死神经元清除的机制。
论文首页
GRg1在PNS中对CKLF1表现出最高的亲和力
为了从复杂的PNS中找出能与CKLF1直接结合的成分,研究者采用生物膜干涉技术(BLI)进行“靶点垂钓”,将His标签的CKLF1固定在Ni-NTA传感器上,再让PNS溶液流过。结果显示,PNS与CKLF1之间存在直接且可逆的结合,解离常数KD为187.00 μg/mL,且结合信号随浓度升高而增强(图1A–C)。随后,研究者收集了结合后的解离缓冲液,用UHPLC-Q Exactive Orbitrap-MS/MS进行分析,从中鉴定出8种人参皂苷成分,包括三七皂苷R1、R2以及人参皂苷Rg1、Rg2、Re、Rb1、Rd、Rg3(图1D)。接着,他们逐一测试这8种皂苷与CKLF1的亲和力,发现人参皂苷Rg1(GRg1)的KD仅为15.52 μmol/L,Bmax达到0.95 nm,是其中结合最强、结合量最大的候选分子(图1E、F)。可以说,GRg1就是PNS里抓住CKLF1最牢的那只手。
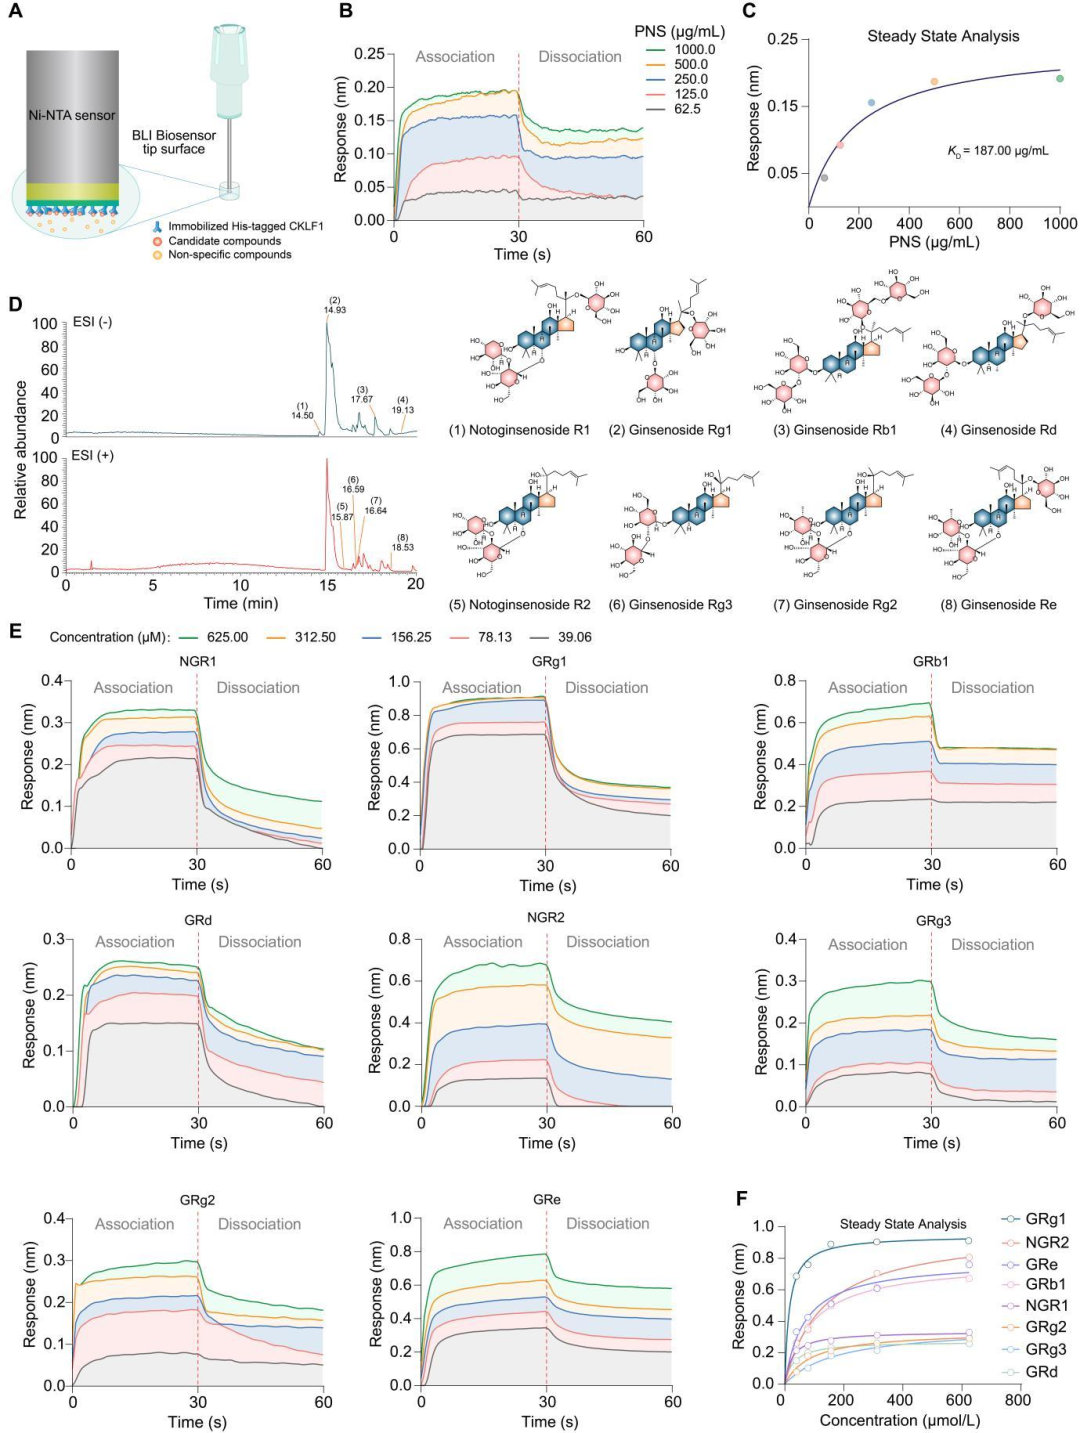
图1
GRg1阻断CKLF1/C27介导的生物学效应
CKLF1发挥功能的关键在于其C端肽段CKLF1-C27与受体CCR4的结合。研究者构建了NanoBRET筛选体系,在活细胞中定量检测CKLF1与CCR4的相互作用。在10 μmol/L浓度下,NGR1、GRg1、GRd和GRe均能不同程度地阻断CKLF1-CCR4结合,其中GRg1抑制率最高,达到52.55%。进一步浓度梯度实验显示,GRg1对CKLF1-CCR4结合的抑制呈剂量依赖性,最大抑制率为83.51%,IC50为31.64 μmol/L(图2A–C)。BLI实验也证实,GRg1可干扰CKLF1与CCR4的结合,IC50为88.38 μmol/L,而GRg1本身与CCR4几乎没有结合(图2D–F)。微尺度热泳(MST)测得的GRg1与CKLF1直接结合的KD为3.42 μmol/L(图2G),与BLI结果相互印证。分子对接和动力学模拟进一步揭示,GRg1的C6-葡萄糖基、C20-葡萄糖基和C12-羟基分别与CKLF1的Asn82、Ser84和Gly19形成关键氢键,这些位点恰好与CKLF1和CCR4的结合界面重叠,说明GRg1是通过“占位”方式拮抗CKLF1与CCR4的相互作用。在功能层面,GRg1能显著抑制CKLF1-C27诱导的IL-6 mRNA表达升高(图2H),并抑制HEK293-CCR4细胞中CKLF1-C27引起的钙内流(图2I–L)。此外,来自OGD/R刺激神经元的条件培养基可诱导小胶质细胞炎症,而GRg1能有效减轻这一反应(图2M–O),说明GRg1在细胞水平上确实能“掐断”CKLF1的下游信号。
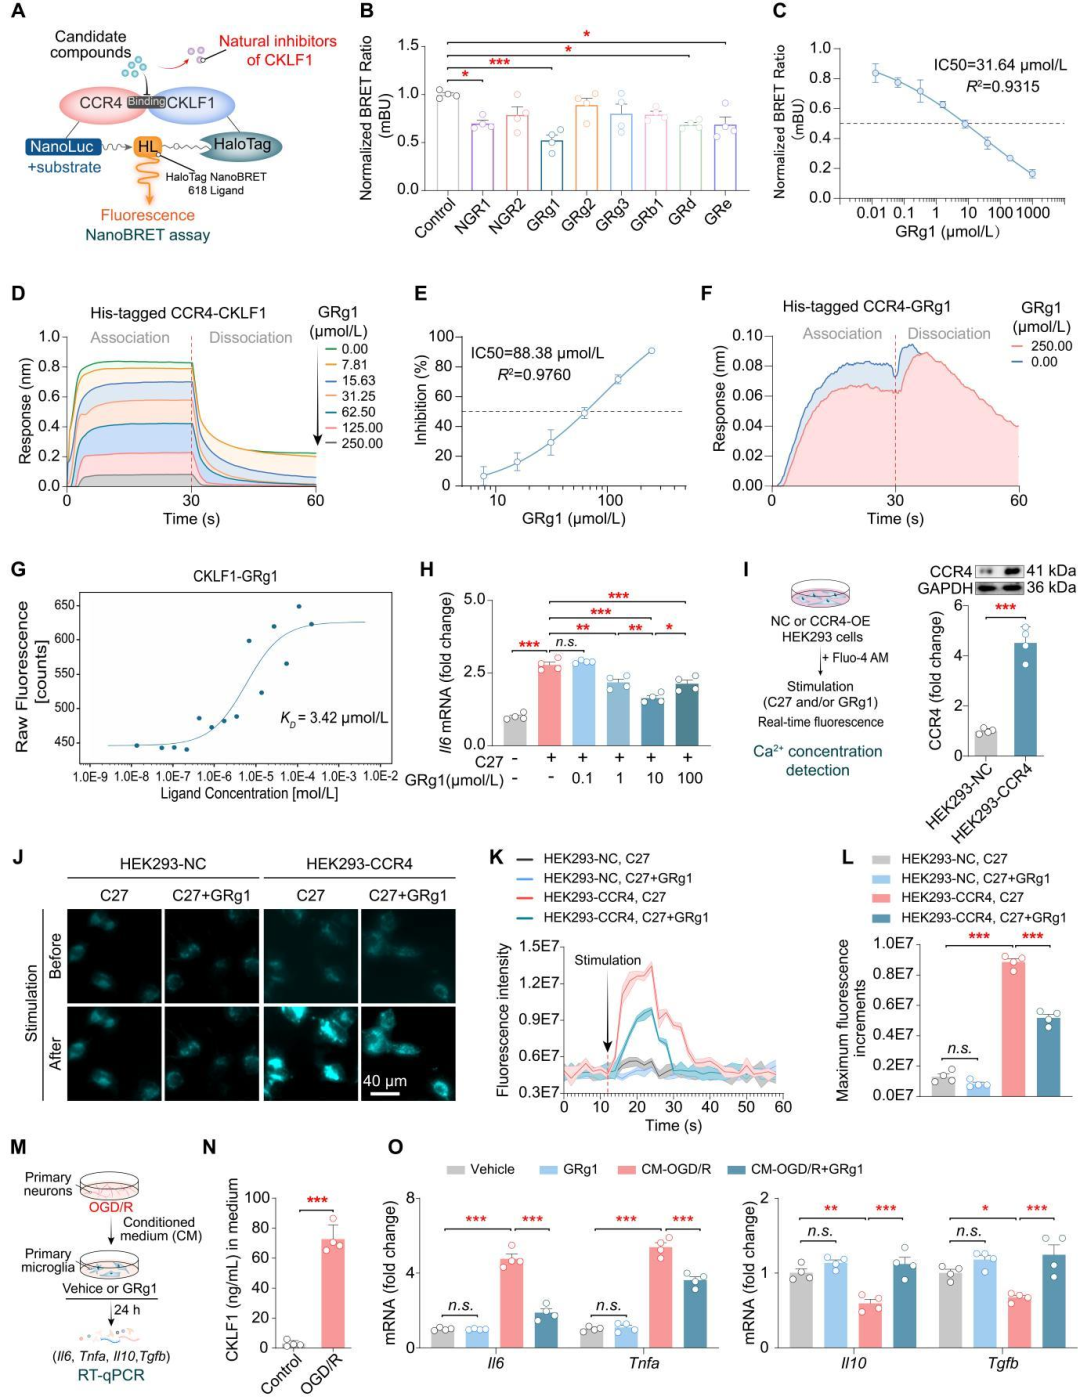
图2
GRg1以CKLF1依赖性方式改善tMCAO后的缺血/再灌注损伤
接下来,研究者在小鼠tMCAO模型中评估了GRg1的疗效。激光散斑成像确认模型建立成功后,给予GRg1(10、20、40 mg/kg,灌胃)、PNS(100 mg/kg)、丁苯酞(NBP,80 mg/kg)或CKLF1拮抗肽CKLF1-C19(10 μg,脑室内注射)。结构MRI显示,GRg1能显著减小脑梗死体积和脑水肿,且呈剂量依赖性,40 mg/kg效果最佳(图3C–E)。mNSS评分、握力、网格行走、转角实验和转棒实验均表明,GRg1能明显改善tMCAO小鼠的感觉运动功能(图S4)。HE和Nissl染色也显示,GRg1能减轻缺血半暗带的神经元坏死和空泡化,增加存活神经元数量(图S5)。药代动力学分析发现,tMCAO后GRg1更容易透过血脑屏障进入梗死侧脑组织,其Cmax和AUC0-last均显著高于对侧和假手术组,提示卒中后血脑屏障的开放反而有利于药物到达病灶。更重要的是,在Cklf1基因敲除小鼠中,GRg1的抗脑缺血损伤作用消失了,而通过脑室内注射重组CKLF1“恢复”CKLF1表达后,GRg1的疗效又重新出现(图3F–I),这有力地证明GRg1的神经保护作用确实依赖于CKLF1。
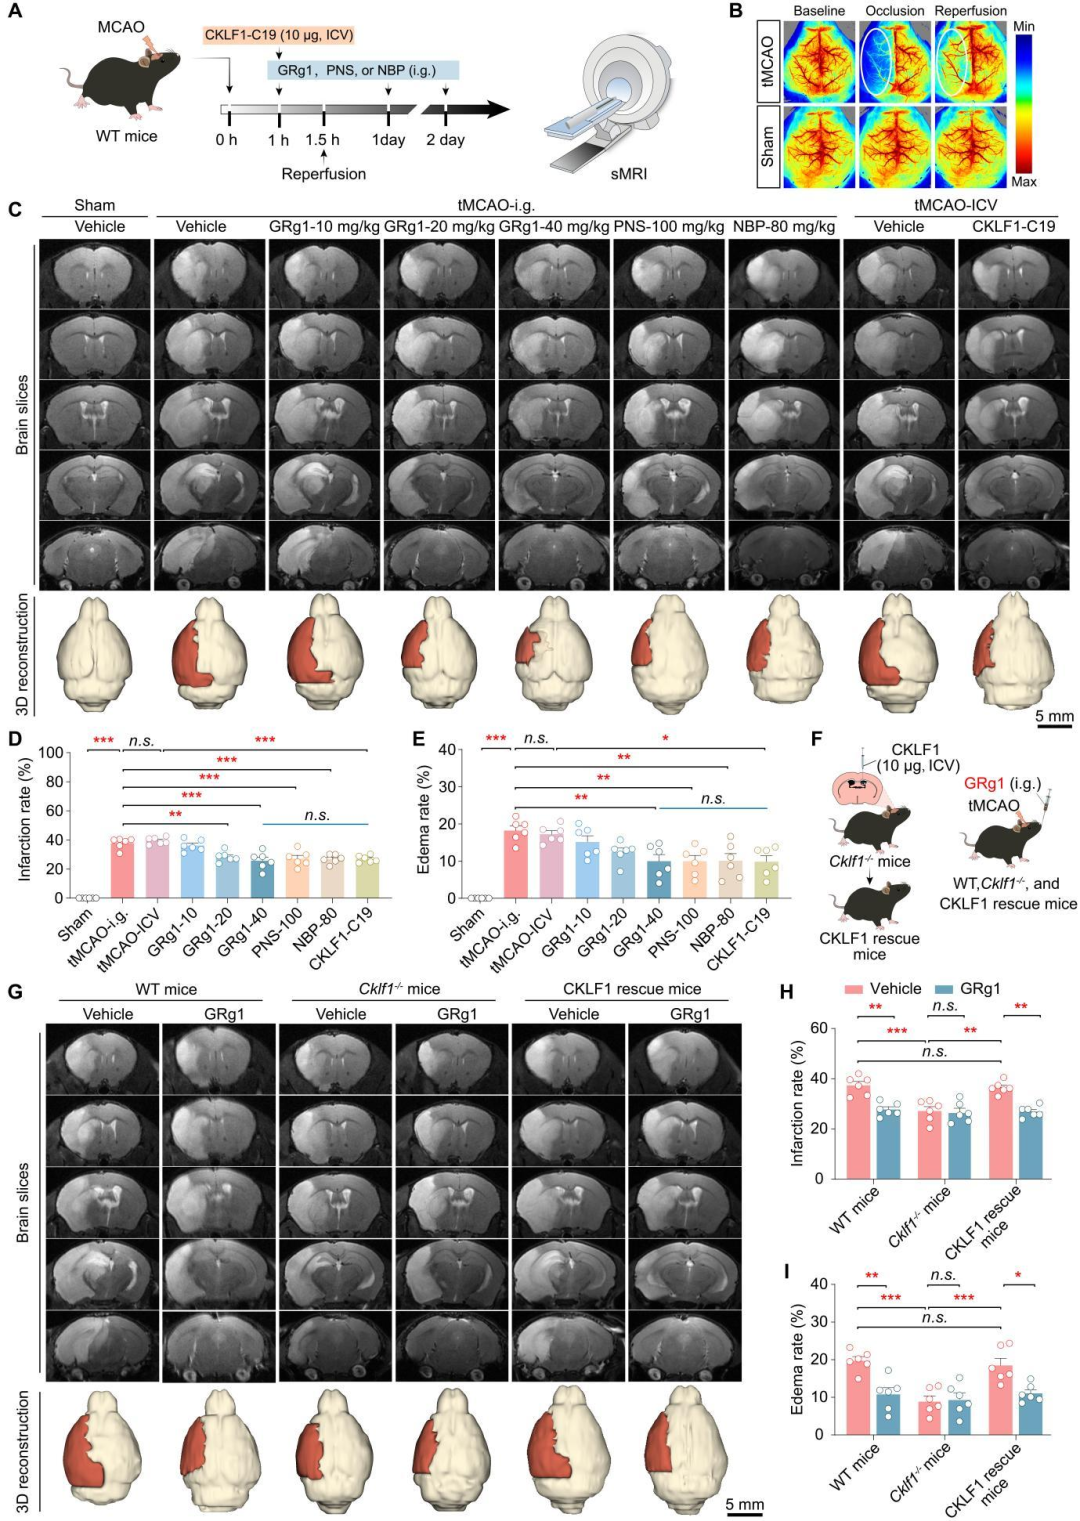
图3
GRg1恢复tMCAO后的脑功能连接
卒中后的脑功能网络往往支离破碎,研究者用功能MRI评估了GRg1连续给药7天后对脑功能连接的影响。低频涨落振幅(ALFF)和局部一致性(ReHo)分析显示,tMCAO小鼠缺血侧初级运动区、次级运动区、初级体感区和压后皮质等区域的神经元活动显著降低,而GRg1治疗能促进这些区域ALFF和ReHo的恢复(图4B)。进一步以感兴趣区(ROI)为基础的脑功能连接分析发现,tMCAO后各脑区之间的连接普遍减弱,而GRg1能增强这些受损区域间的连接,尤其是尾壳核与运动、感觉和认知相关脑区的连接显著增强(图4C–I)。这些影像学证据提示,GRg1不仅减轻结构损伤,还能在神经网络层面促进脑功能的重新“接线”。
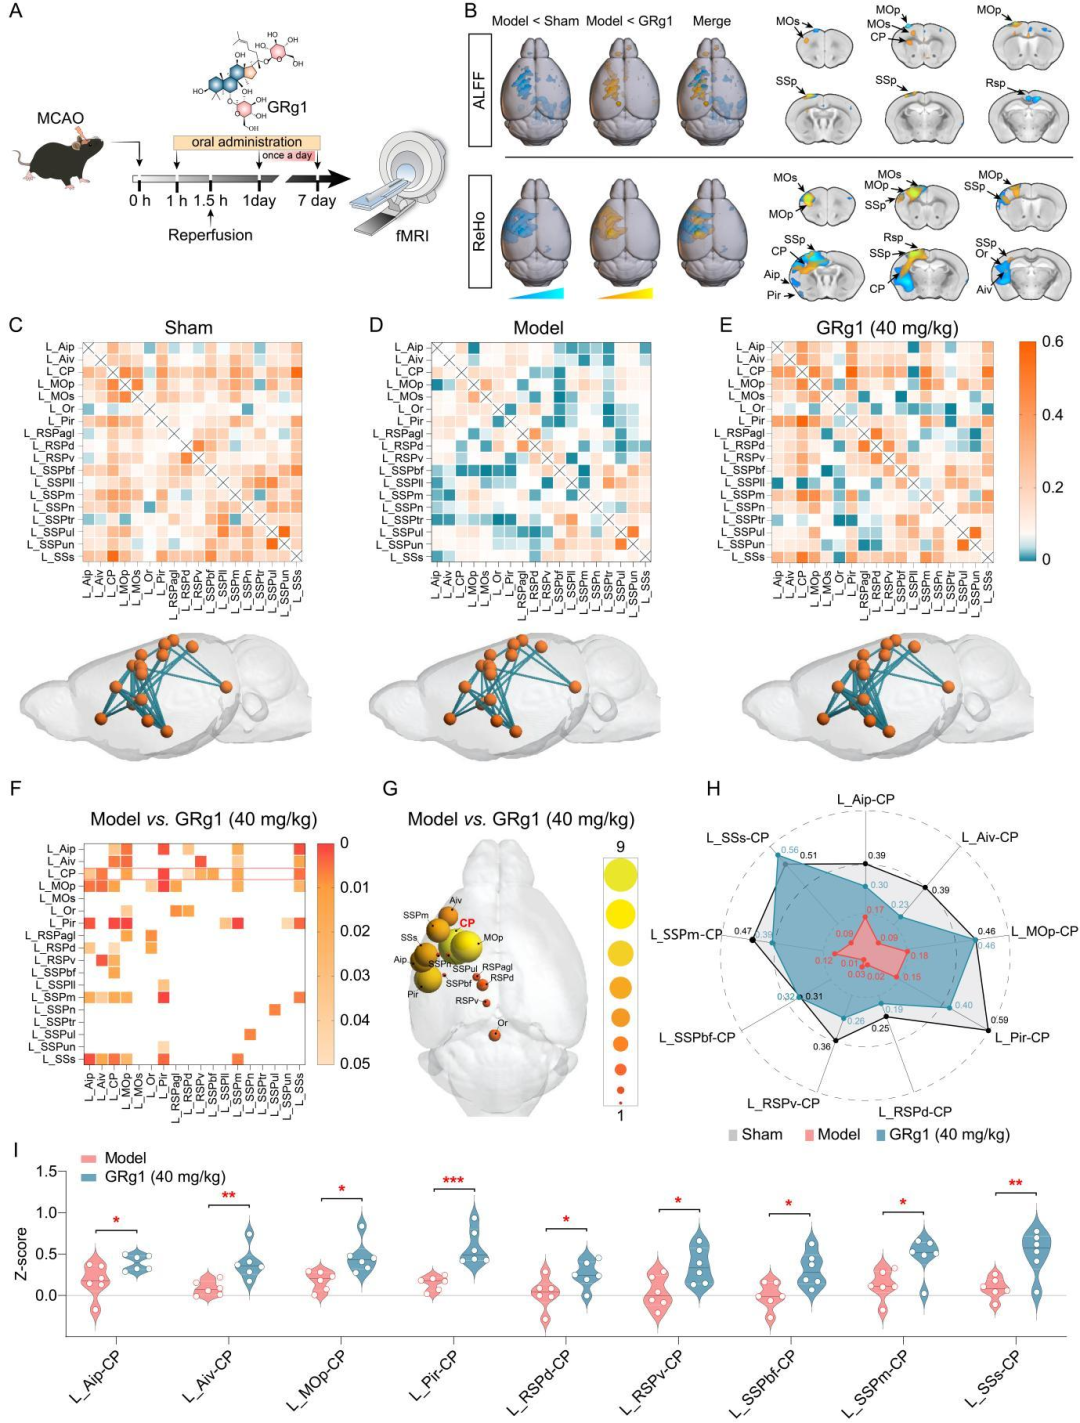
图4
GRg1降低AIS中死亡/濒死神经元密度和DAMP释放
那么,GRg1究竟是如何减轻神经炎症的呢?研究者把目光聚焦到缺血半暗带中死亡/濒死神经元的清除过程。荧光三标(Iba1标记小胶质细胞、NeuN标记神经元、TUNEL标记死亡/濒死细胞)显示,GRg1治疗后,半暗带内小胶质细胞数量和死亡/濒死神经元数量均显著减少(图5A–C)。有意思的是,GRg1并没有显著提高小胶质细胞的“内化能力”(即吞噬死亡神经元的速度),也没有增加被吞噬死亡神经元在总死亡神经元中的比例(图5D、E)。这说明GRg1的着力点可能不在“吃”,而在“消化”。果然,GRg1显著上调了小胶质细胞中CD68的表达,CD68是溶酶体活性的标志物,提示GRg1增强了小胶质细胞的降解能力(图5F–I)。伴随降解增强,半暗带中DAMP(HMGB1和HSP70)水平显著下降(图5J、K),促炎因子iNOS、COX-2、Il6、Tnfa表达降低,抗炎因子Il10、Tgfb表达升高(图5L–Q),小胶质细胞也更多地向抗炎表型极化。这些结果说明,GRg1通过增强小胶质细胞的“消化能力”,加速了死亡/濒死神经元的清除,从而减少了DAMP释放,给神经炎症“降温”。
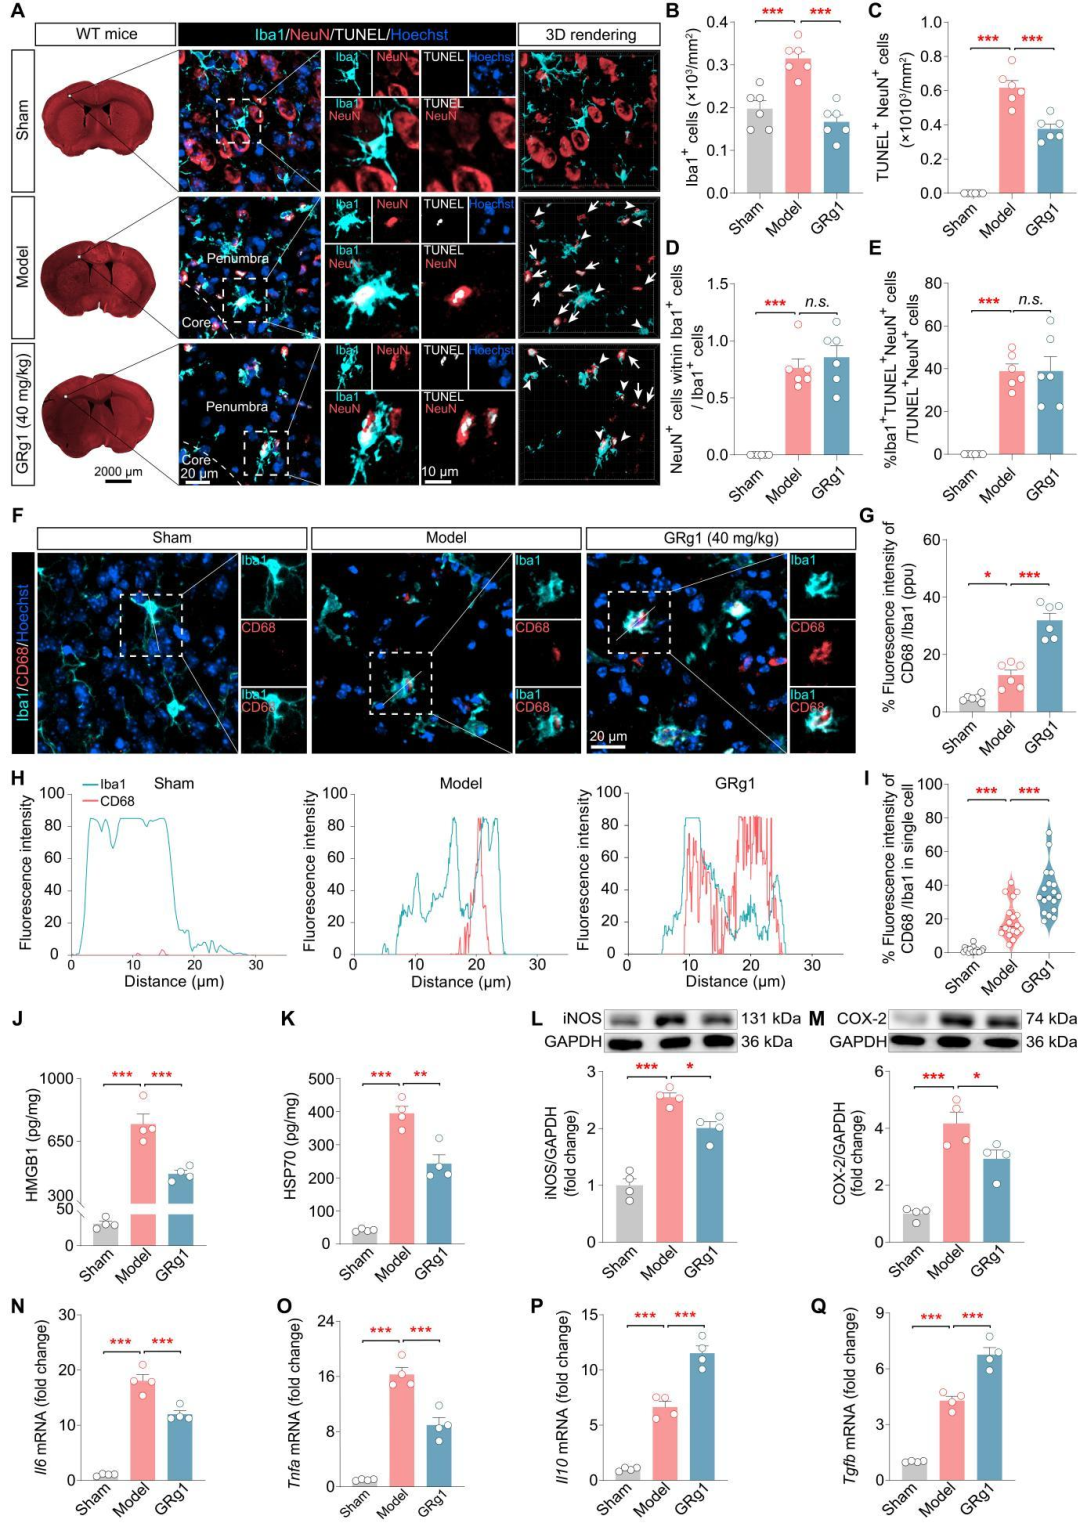
图5
CKLF1缺失消除GRg1增强的死亡/濒死神经元清除
为了验证GRg1的作用是否真的通过CKLF1,研究者在Cklf1敲除小鼠中重复了上述实验。结果非常干脆:在Cklf1缺失的情况下,GRg1对半暗带小胶质细胞数量、死亡/濒死神经元数量、小胶质细胞内化能力以及CD68表达的上调作用统统消失了(图6A–I)。同时,GRg1对DAMP、促炎因子和抗炎因子的调节作用也被CKLF1缺失所“抹平”(图6J–Q)。这就像拔掉了电源,GRg1这台机器就转不起来了,进一步确认CKLF1是GRg1发挥作用的关键靶点。
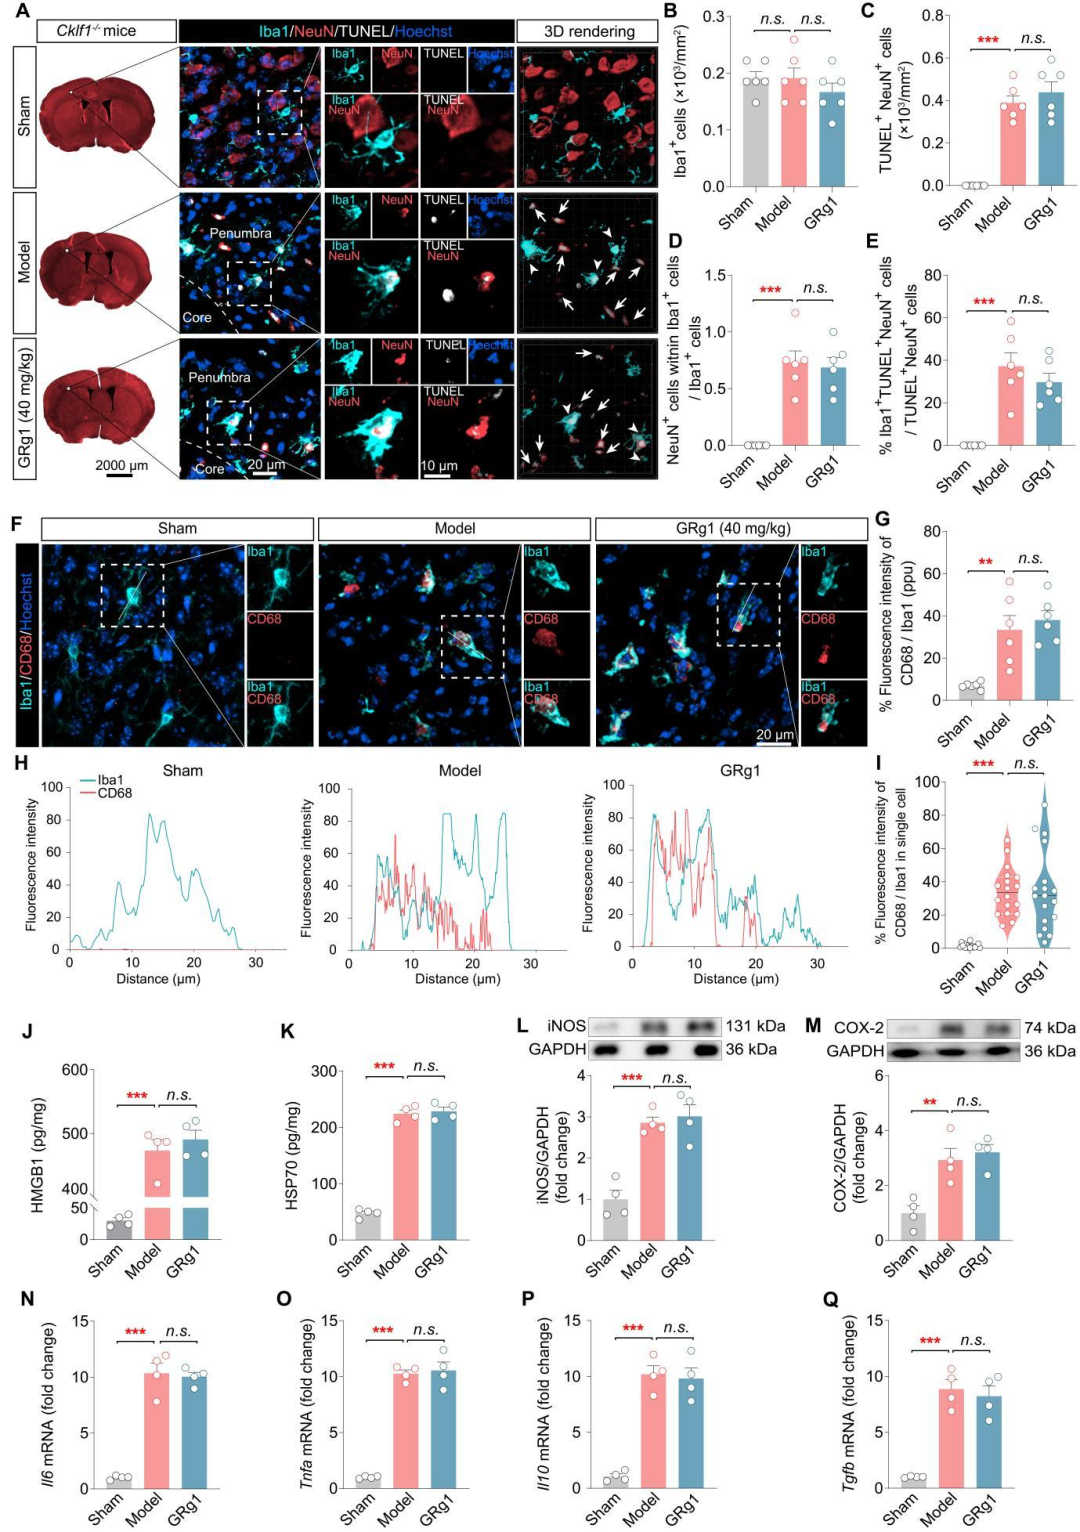
图6
GRg1拮抗CKLF1-C27诱导的小胶质细胞迁移和降解功能障碍
CKLF1不仅影响小胶质细胞的降解功能,还通过CCR4趋化小胶质细胞向半暗带迁移。Transwell实验显示,CKLF1-C27能显著促进BV-2小胶质细胞迁移,而GRg1能完全阻断这一效应,效果与细胞骨架抑制剂Cyto D相当(图7A–C)。在降解功能方面,研究者将BV-2小胶质细胞与凋亡的SH-SY5Y细胞共培养,发现CKLF1-C27会导致小胶质细胞内吞噬的凋亡细胞“消化不掉”,而GRg1能逆转这一障碍(图7D–F)。LysoTracker染色显示,CKLF1-C27使小胶质细胞溶酶体体积异常增大,提示溶酶体功能受损,而GRg1能恢复溶酶体的正常形态(图7G–I)。LGALS3斑点实验进一步证实,CKLF1-C27引起溶酶体膜通透性增加,GRg1则能减少LGALS3阳性细胞比例(图7J、K)。此外,GRg1还能逆转CKLF1-C27对溶酶体酸化的抑制(图7L–N)。这些结果说明,GRg1不仅能阻止小胶质细胞被CKLF1“带偏”跑向病灶,还能修复它们被CKLF1破坏的“消化系统”。
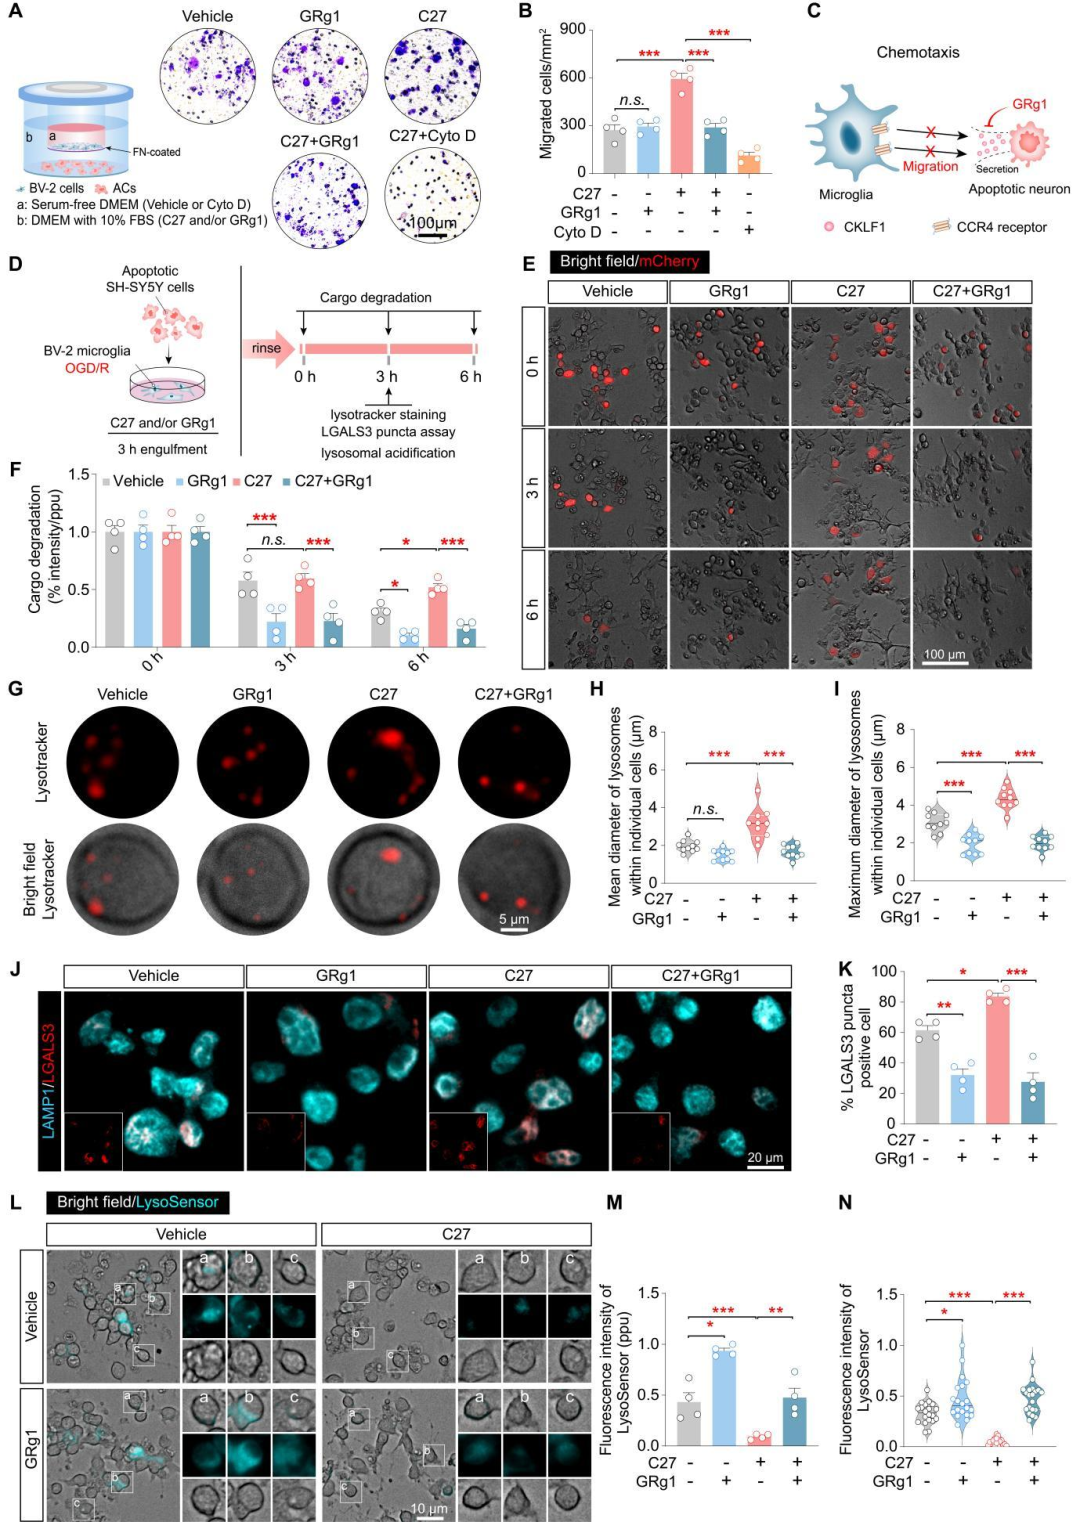
图7
GRg1通过mTORC1/TFEB通路促进小胶质细胞降解
溶酶体的生成和功能主要由转录因子EB(TFEB)调控,而TFEB的活性又受mTORC1磷酸化抑制。研究者发现,CKLF1-C27会抑制小胶质细胞中TFEB的核转位,而GRg1能逆转这一抑制,促进TFEB进入细胞核(图8A–C)。同时,GRg1还能上调TFEB下游靶基因Mcoln1、Atp6v1h、Atp6v0d1、Ctsb和Ctsf的mRNA水平(图8D),这些基因分别参与溶酶体钙通道、酸化、水解酶等功能。在机制上,CKLF1-C27增加了mTOR(Ser2448)和TFEB(Ser211)的磷酸化水平,而GRg1能显著降低这两个位点的磷酸化(图8E、F),从而解除mTORC1对TFEB的抑制。在Ccr4敲除的BV-2细胞中,GRg1对TFEB活化和mTOR/TFEB磷酸化的调节作用完全消失(图8G、H),说明GRg1是通过CKLF1-CCR4轴来调控这一通路的。雷帕霉素(mTORC1抑制剂)能模拟GRg1的效应,而Tfeb敲除则取消了GRg1对小胶质细胞降解的促进作用(图8I–L)。至此,一条清晰的信号通路浮出水面:GRg1结合CKLF1,阻断其与CCR4的结合,抑制mTOR磷酸化,促进TFEB入核,增强溶酶体功能,最终加速死亡/濒死神经元的降解清除(图8M)。
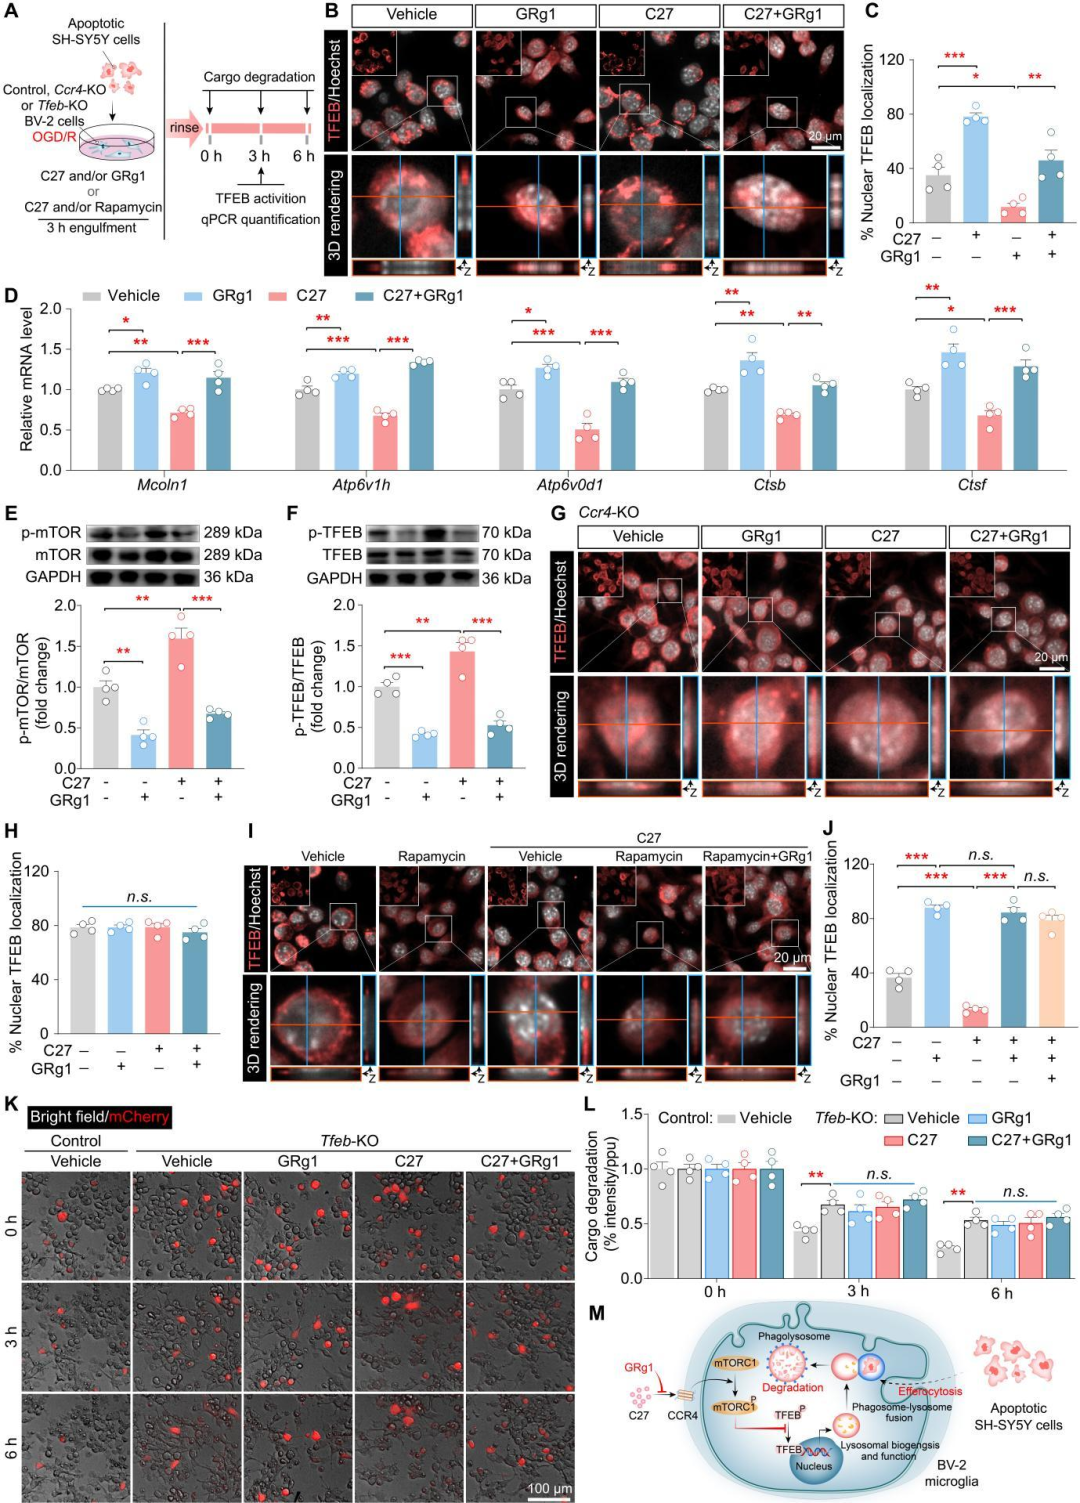
图8
小结
这项研究把三七总皂苷中的GRg1推到了抗缺血性卒中舞台的中央。它通过结合CKLF1、阻断CKLF1-CCR4相互作用,激活CCR4/mTORC1/TFEB通路,修复小胶质细胞的溶酶体功能,从而加速死亡/濒死神经元的清除,减少DAMP释放,缓解神经炎症。研究不仅为三七总皂苷的抗AIS作用提供了分子层面的解释,也展示了一套从复杂天然产物中高效筛选靶向抑制剂的策略。对于临床医生而言,GRg1这个源自传统中药的化合物,或许能为缺血性卒中后神经炎症的治疗提供一个新的思路——不是简单地“抗炎”,而是帮助大脑把“垃圾”清理干净,让炎症自然消退。
参考文献:Fan, Pinglong et al. “Ginsenoside Rg1 alleviates post-ischemic stroke neuroinflammation by inhibiting CKLF1-mediated suppression of dead/dying neuron clearance.” Acta pharmaceutica Sinica. B vol. 16,6 (2026): 3632-3654. doi:10.1016/j.apsb.