深度解析医学证据,lxfs.net为你支撑决策
背景介绍
成年哺乳动物脊髓再生能力有限,脊髓损伤(SCI)常导致永久性神经功能缺损。尽管基因干预可能增强损伤神经元的内在生长能力,但SCI后轴突延伸在空间上仍可能受限且组织不良,这可能限制功能恢复。SCI是一种毁灭性神经系统疾病,其特征是脊髓内长轴突的破坏,导致显著神经功能障碍。目前,严重SCI后的自发神经功能恢复有限,恢复功能连接的有效策略仍不足。特别是,修复损伤的皮质脊髓束(CST)轴突仍具挑战性,因为成年中枢神经系统(CNS)神经元表现出有限的内在生长能力,且必须在高度抑制性病变微环境中延伸。因此,增强内在神经元再生和改善结构重连对SCI修复至关重要。近期对调控内在轴突生长分子通路的深入研究表明,磷酸酶和张力蛋白同源物(PTEN)的缺失或抑制显著增强成年皮质脊髓神经元的内在再生能力并促进SCI后轴突再生长。PTEN负调控雷帕霉素机制靶点(mTOR)信号,从而限制神经元生长。此外,mTOR通路显著影响神经元胞体大小、CNS组织结构和蛋白质合成,这些对维持轴突生长都至关重要。RNA干扰(RNAi)是一种强大且特异的基因沉默技术,已通过使用小干扰RNA(siRNA)抑制靶基因用于治疗多种疾病。siRNAs引导互补信使RNA(mRNA)的序列特异性切割和随后的降解,从而抑制靶基因表达。目前,RNAi是一种临床上有前景的基因沉默策略,已在多种临床环境中评估。近期几项研究调查了PTEN RNAi在动物SCI模型中的有效性,证实其治疗潜力可能归因于激活CST轴突的生长。然而,siRNA有效递送至靶细胞是影响体内应用治疗效果的关键因素。游离siRNAs在血液循环中通常不稳定,且由于其多阴离子性质而表现出低细胞穿透能力。为克服这些障碍,已开发各种递送材料如脂质体、聚合物和纳米颗粒(NPs)。这些siRNA载体显著改善了体内递送效率;然而,它们不能满足某些特定疾病如诱导神经修复的治疗需求。功能性神经组织表现出特定的定向结构。这在脊髓中尤为明显,这些定向神经连接决定功能信息的正常传递。尽管递送靶向PTEN的siRNA(siPTEN)增强损伤神经元的内在生长潜力,但单纯分子激活不提供空间引导,新延伸的轴突可能仍组织不良,无法桥接复杂病变环境。这往往导致实践中结果不理想。值得注意的是,轴突生长的定向引导可能改善SCI后修复结果。因此,将PTEN抑制与定向引导线索偶联可能有助于将内在生长激活转化为具有空间偏倚的神经突/轴突延伸,尽管其对功能恢复的贡献需要直接实验评估。磁性NPs已被探索为能够在施加磁场(MFs)下调节神经突取向和轴突延伸的外部引导工具。在各种磁性NPs中,超顺磁性氧化铁NPs(SPIONs)因其生物相容性、可生物降解性、磁共振(MR)成像能力和对MFs的响应性而被广泛研究用于药物递送。由于其超顺磁性,SPIONs在MF去除后表现出可忽略的剩磁,这降低持久聚集风险并支持其生物医学应用。因此,团队假设将siPTEN递送与SPION介导的磁响应性整合的单一纳米平台将同时激活内在轴突生长程序并提供外部定向线索,以改善SCI后有组织的轴突延伸和功能恢复。
研究思路
针对上述挑战,北京基础医学研究所刘志强教授、袁增强教授联合首都医科大学宣武医院吴浩教授、菅凤增教授等团队开发了双功能磁性纳米颗粒,将内在神经突生长激活与外部磁引导整合,用于SCI后定向神经突延伸和功能恢复。团队制备了SPION嵌入的聚乳酸-羟基乙酸共聚物(PLGA)核,依次涂覆ROS响应性聚合物bPDEA、靶向PTEN的siRNA和外层bPDEA。bPDEA层促进细胞内化和氧化损伤微环境中ROS响应性siPTEN释放。PTEN抑制伴随蛋白激酶B(AKT)和糖原合成酶激酶3β(GSK-3β)磷酸化增加。含SPION的纳米颗粒赋予磁响应性,允许神经突延伸在外部磁场下偏置。在SCI小鼠中,该治疗增加损伤周围和尾侧的EGFP阳性轴突轮廓,减少GFAP和Iba1反应性,并改善运动结果。这些发现为结合PTEN靶向生长激活与磁场依赖性神经突生长调节以改善SCI后结果提供了概念验证。相关内容以 Magnetic Nanoparticle-Mediated PTEN Inhibition Promotes Directional Neurite Growth for Spinal Cord Injury Repair 发表在 Advanced Functional Materials!
图片解析
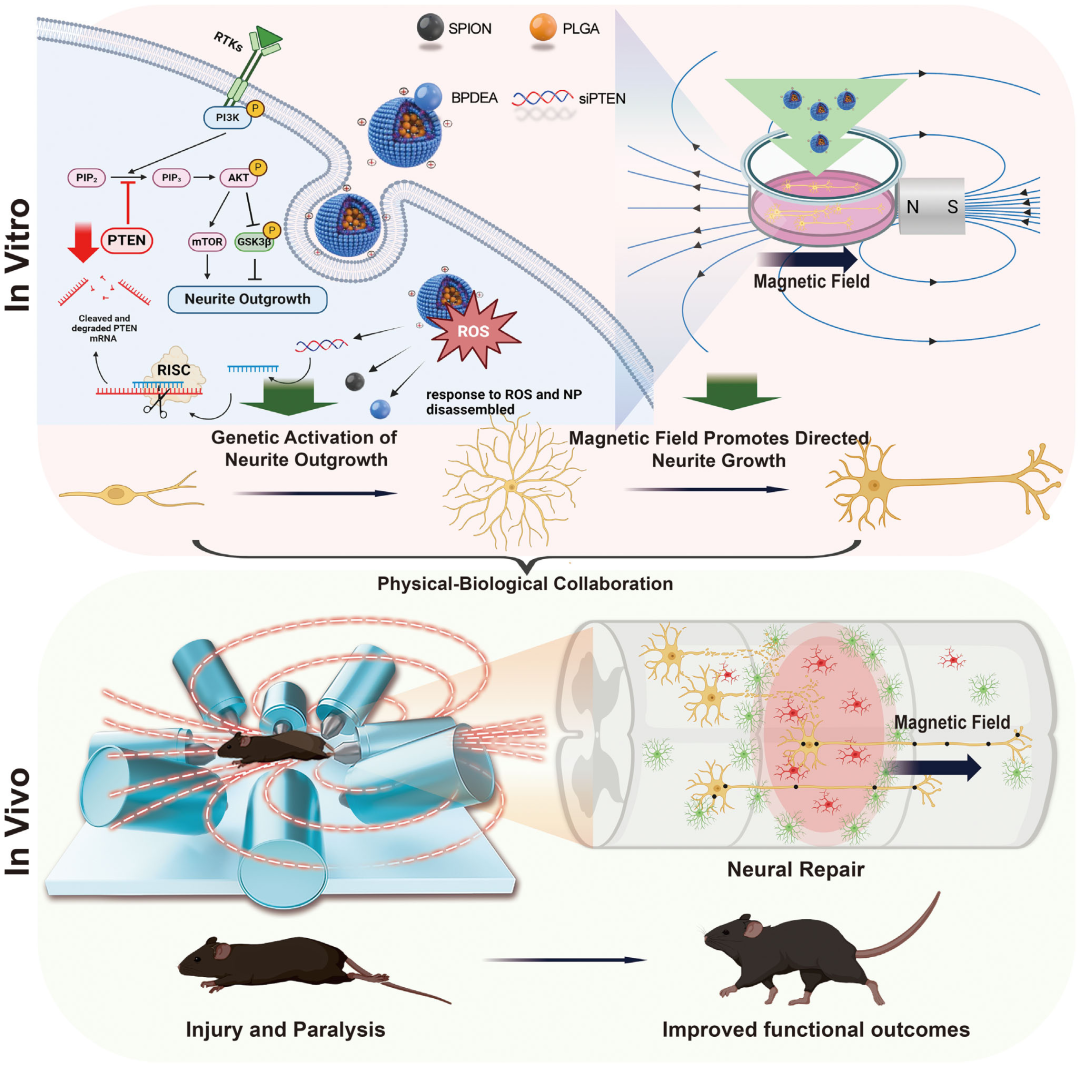
图1. PLGA[SPION]@bPDEA@siPTEN纳米平台用于脊髓损伤修复示意图:PLGA[SPION]@bPDEA@siPTEN通过层层组装制备并注射到损伤部位头侧。纳米颗粒表现出细胞摄取和ROS响应性解体。体外,纳米颗粒处理的神经培养物暴露于外部磁场产生神经突延伸的定向偏置。体内,纳米平台局部给药联合磁场干预与损伤周围和尾侧EGFP阳性轴突轮廓增加及SCI后功能结果改善相关。
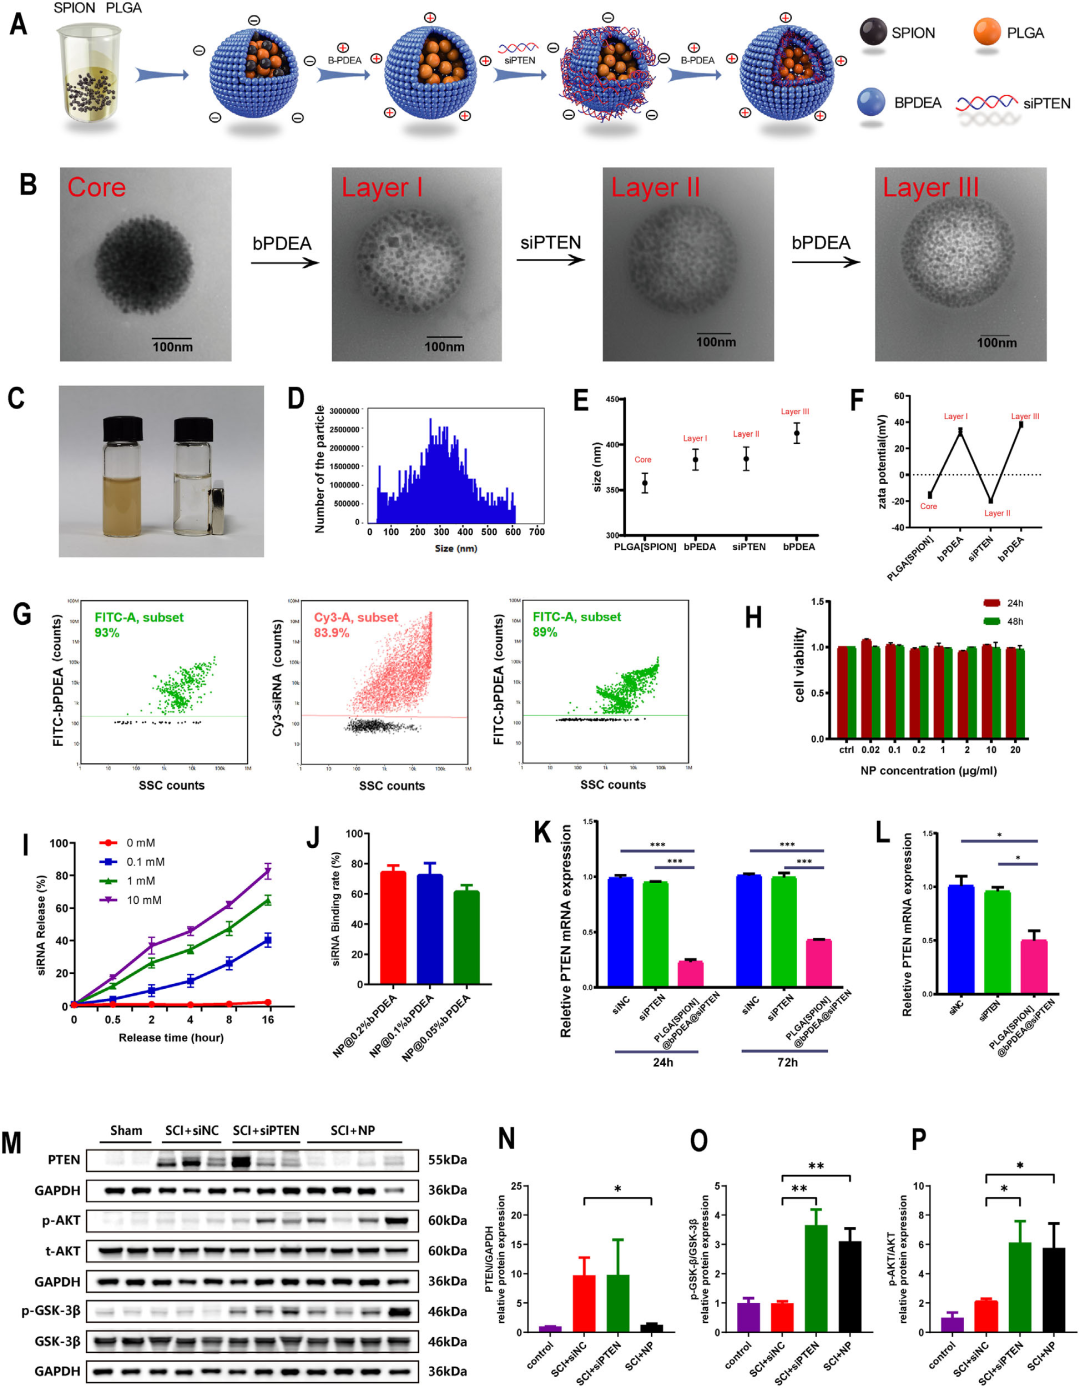
图2. PLGA[SPION]@bPDEA@siPTEN的制备和表征:(A) PLGA[SPION]@bPDEA@siPTEN合成过程示意图;(B) SPIONs嵌入PLGA NPs的TEM图像;(C) 外部磁体暴露后纳米颗粒的磁响应性;(D) 层层组装过程中粒径变化;(E) DLS分析证实粒径随层积累逐渐增加;(F) zeta电位值随每层施加而变化;(G) NanoFCM分析显示FITC-bPDEA和Cy3-siRNA的荧光标记率超过80%;(H) HT22细胞与纳米颗粒孵育24或48 h后的细胞毒性;(I) 不同氧化条件下siRNA从NPs的释放;(J) 不同bPDEA浓度制备的NPs的siRNA结合率;(K) 原代脊髓神经元中PTEN mRNA表达;(L) 体内PTEN基因沉默效果;(M) 治疗后2周PTEN蛋白表达的Western blot分析;(N-P) p-AKT/t-AKT和p-GSK-3β/GSK-3β比值。
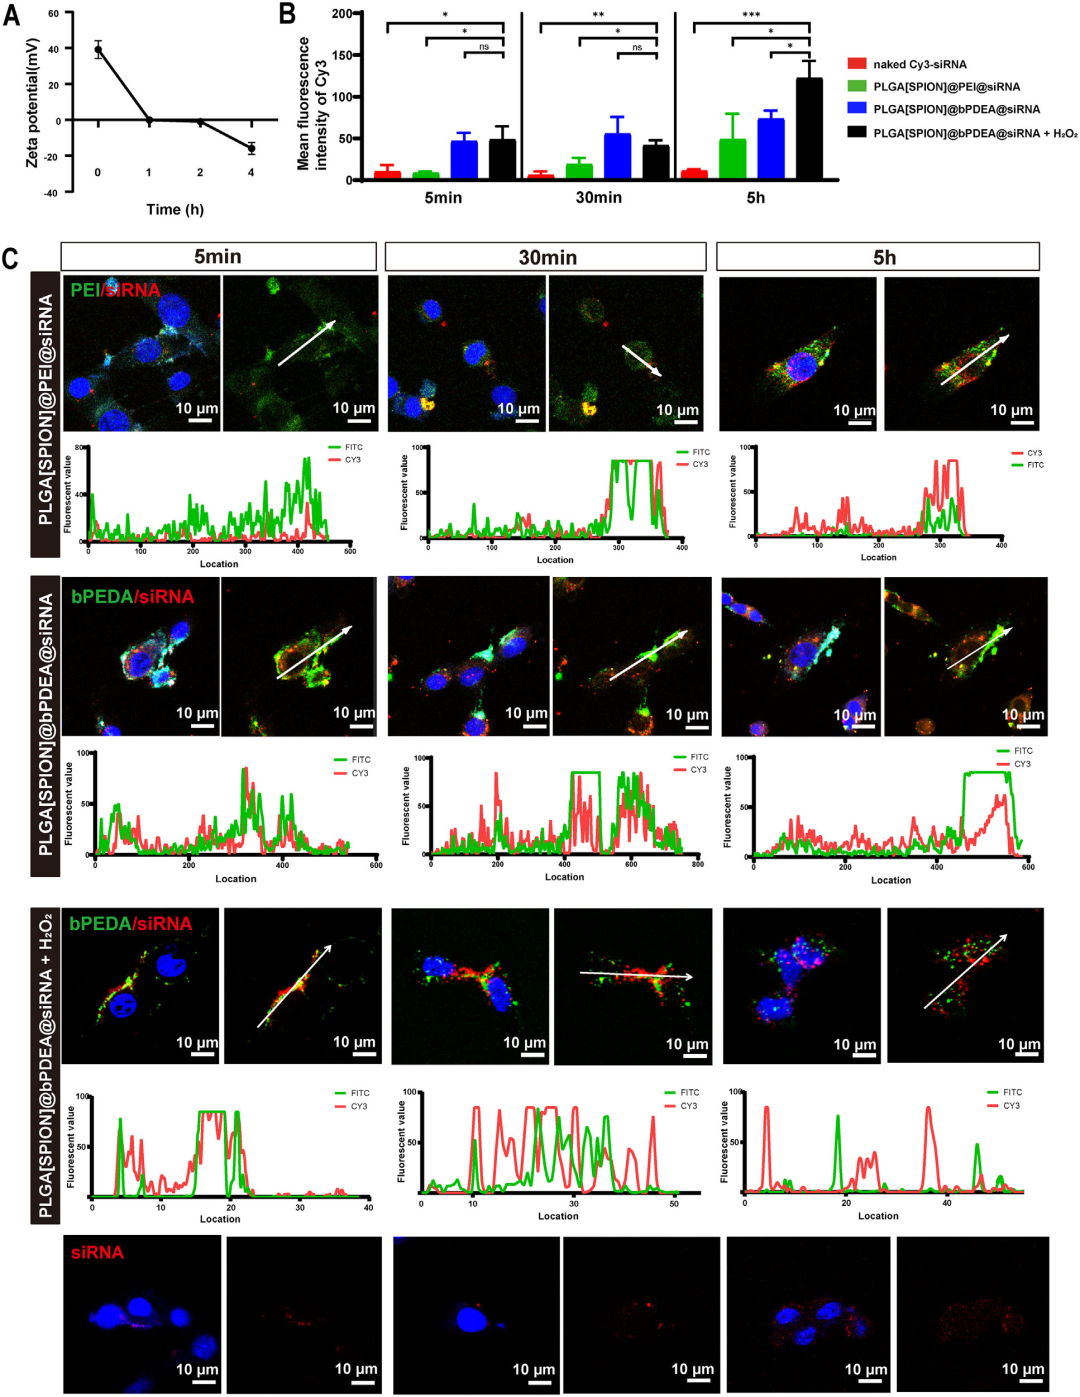
图3. PLGA[SPION]@bPDEA@siRNA实现快速细胞内化和ROS响应性siRNA释放:(A) bPDEA在1-2 h内的电荷反转;(B) 细胞内Cy3荧光定量分析;(C) HT22细胞不同处理后的共聚焦显微镜图像。
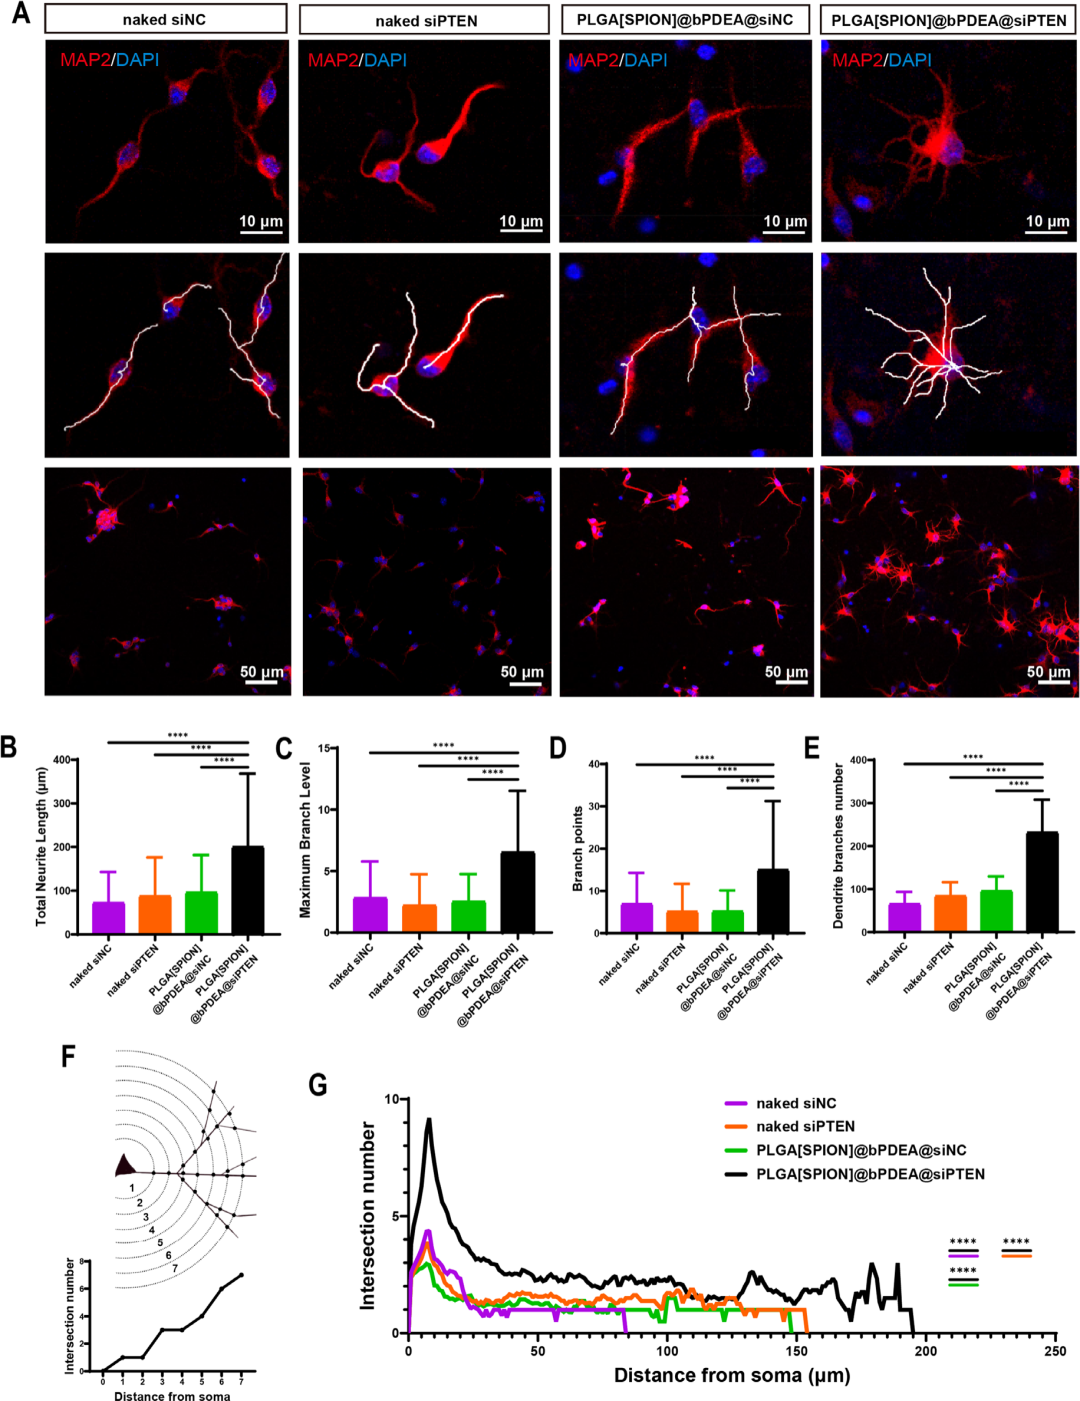
图4. PLGA[SPION]@bPDEA@siPTEN激活原代脊髓神经元的内在神经突生长:(A) MAP-2免疫染色可视化神经元突起;(B-E) 总神经突长度、最大分支水平、分支点和神经突分支数;(F) Sholl分析示意图;(G) 神经突交叉数比较。
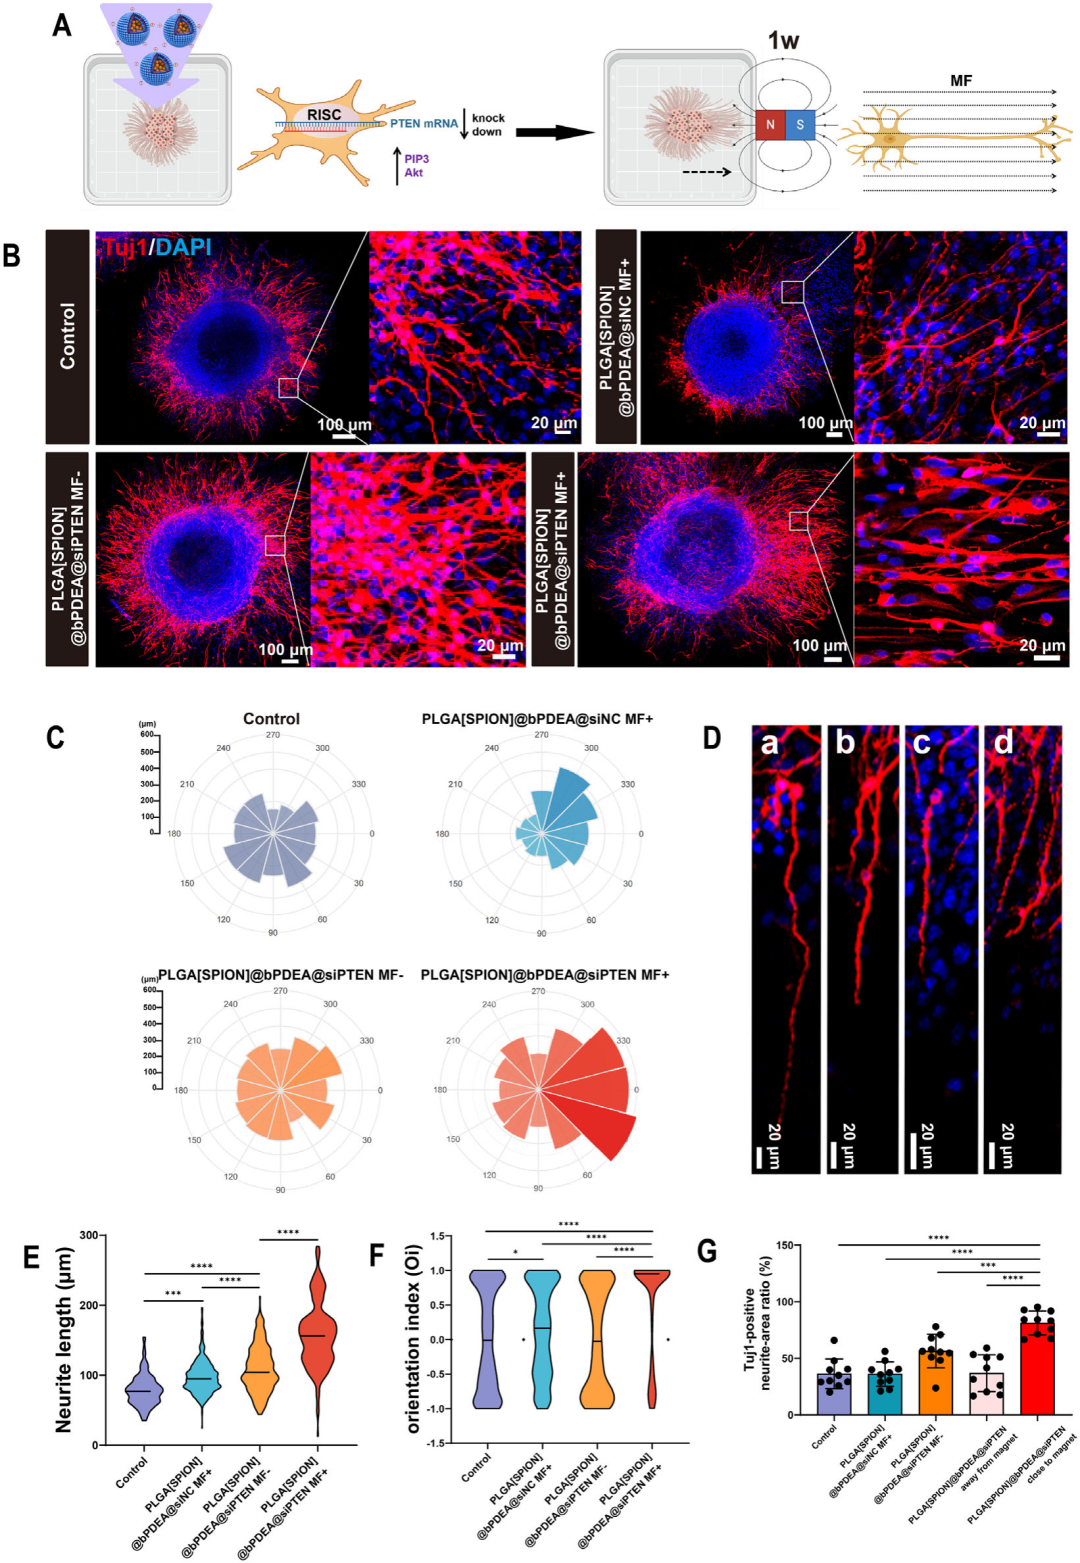
图5. PLGA[SPION]@bPDEA@siPTEN将内在PTEN抑制与磁引导偶联促进定向神经突生长:(A) NSC神经球磁场干预示意图;(B,D) Tuj1染色显示神经突生长;(C) 雷达图可视化各组神经突延伸程度;(E) 平均神经突长度;(F) 神经突取向指数;(G) Tuj1阳性神经突面积比。
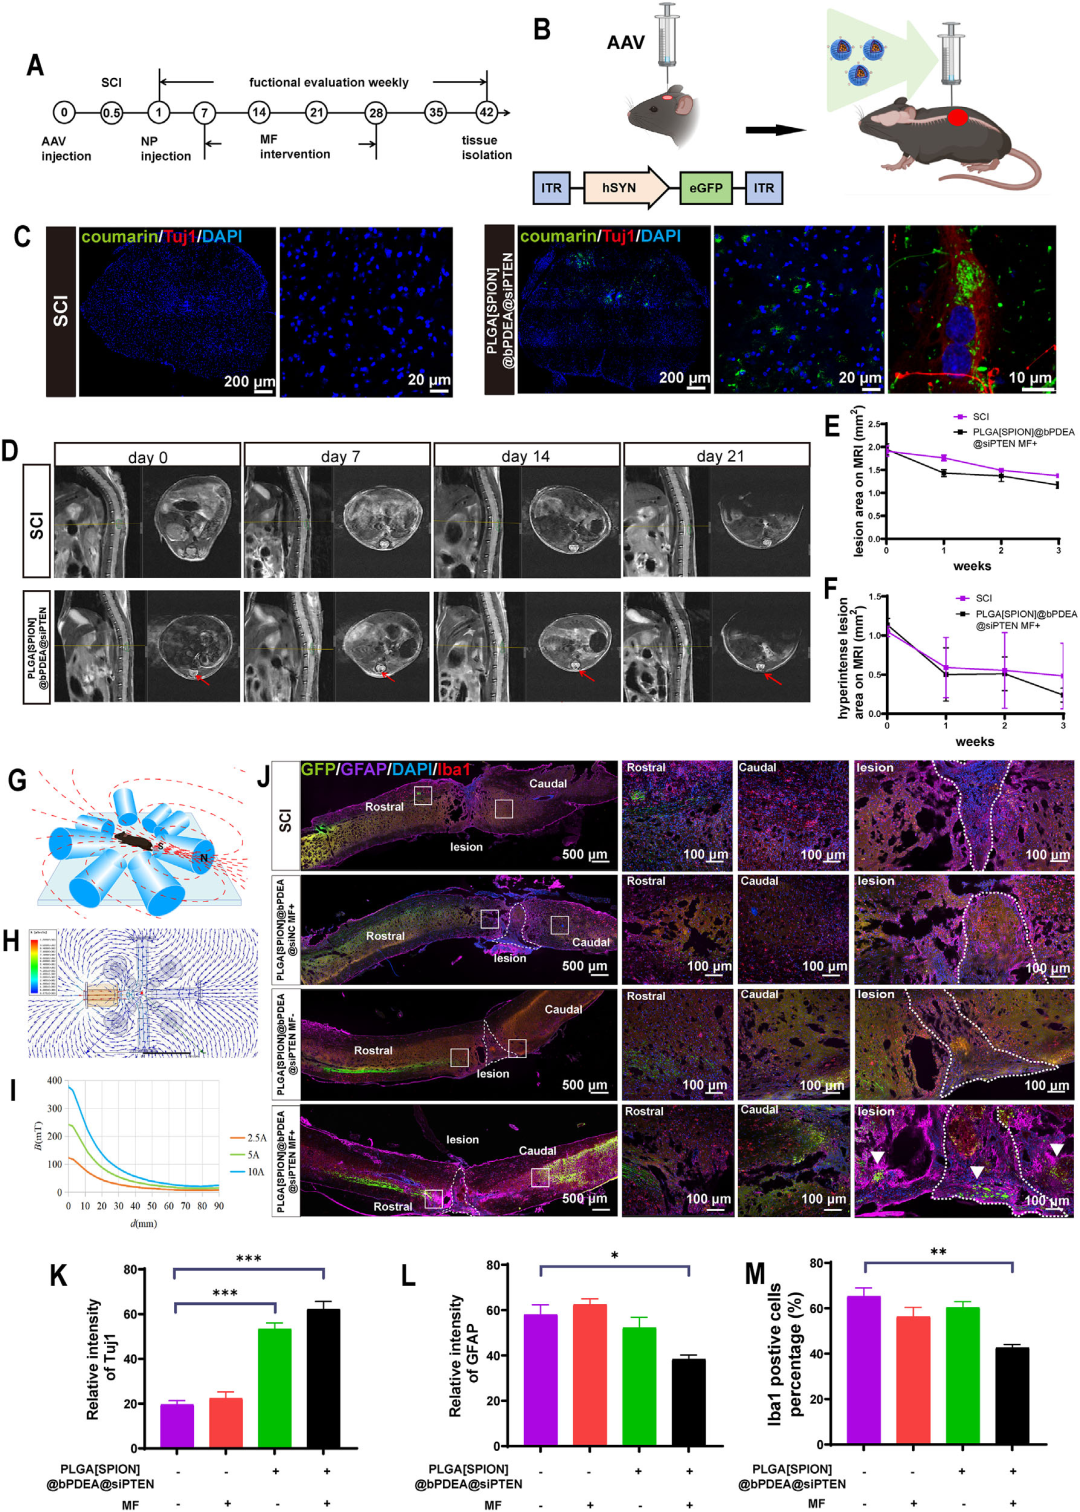
图6. PLGA[SPION]@bPDEA@siPTEN联合MF增加SCI后EGFP阳性轴突轮廓并调节病变相关组织学标志物:(A) 治疗方案示意图;(B) 体内实验程序示意图;(C) coumarin阳性纳米颗粒信号与Tuj1阳性结构部分重叠;(D) SCI和PLGA[SPION]@bPDEA@siPTEN组小鼠胸段脊髓矢状面MRI图像;(E,F) 损伤面积和周围高信号病变面积;(G) 八极电磁体示意图;(H) 磁场空间分布;(I) 磁场强度与距离的关系;(J) 各组脊髓纵切面GFAP/Tuj1/DAPI染色;(K-M) Tuj1、GFAP和Iba1相对荧光强度定量。
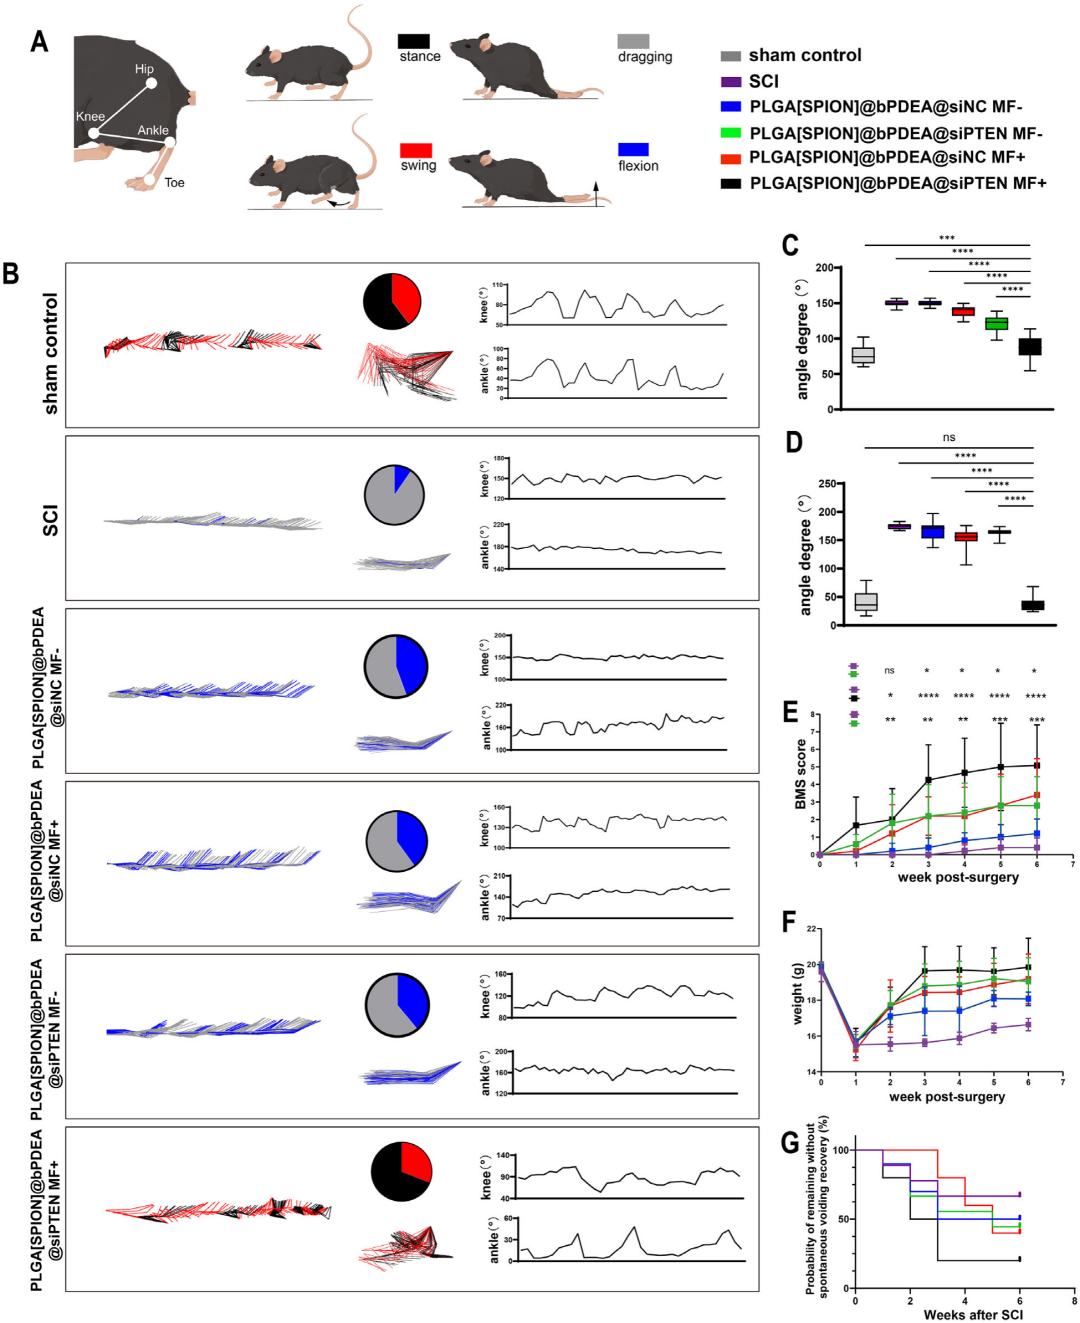
图7. PLGA[SPION]@bPDEA@siPTEN在MF下治疗SCI小鼠的运动功能恢复:(A) 小鼠后肢运动关节和后肢步态四阶段示意图;(B) 各组颜色编码棍图视角和角度曲线;(C) 膝关节角度分布和(D) 踝关节角度分布;(E) SCI后各组每周BMS评分比较;(F) 各组平均每周体重;(G) SCI后自发排尿恢复时间的Kaplan-Meier分析。
结论
该研究开发了双功能磁性纳米颗粒,将内在神经突生长激活与外部磁引导整合,用于SCI后定向神经突延伸和功能恢复。SPION嵌入的PLGA核依次涂覆ROS响应性bPDEA、靶向PTEN的siRNA和外层bPDEA。bPDEA层促进细胞内化和氧化损伤微环境中ROS响应性siPTEN释放。PTEN抑制伴随AKT和GSK-3β磷酸化增加。含SPION的纳米颗粒赋予磁响应性,允许神经突延伸在外部磁场下偏置。在SCI小鼠中,该治疗增加损伤周围和尾侧的EGFP阳性轴突轮廓,减少GFAP和Iba1免疫反应性,并改善运动结果。这些发现为结合PTEN靶向生长激活与磁场依赖性神经突生长调节以改善SCI后结果提供了概念验证。该研究的局限性包括:局部给药、病变响应性纳米平台不赋予细胞类型特异性靶向;PTEN是主要肿瘤抑制调节因子,其在增殖性非神经元细胞中的抑制可能具有超出神经修复的生物学后果;6周观察期不足以评估长期增殖或致瘤风险。因此,当前发现应视为概念验证而非近期转化安全性的证据。未来需要细胞类型特异性定量、流式细胞术和分选细胞转录组或蛋白质分析以确定神经元与非神经元摄取的相对贡献。此外,需要长期和细胞类型特异性安全研究以及电生理学、突触标志物分析、跨突触追踪和通路特异性中断研究以确定是否发生功能回路修复。